来源页 · 原书全文 · 第2章
能量:生命大厦建筑师
保留王立铭原书正文、原段、注释和插图。推荐序分别保留撰写者身份;课程另行录入,不混入原书。
从砖头瓦块到生命大厦
从维勒的尿素到米勒的烧瓶,建造生命的原材料问题得到了部分解决。看起来不管是在实验室的烧瓶里,还是在远古地球的环境中,制造出组成地球生命大厦的砖头瓦块,应该都不是什么难事。在今天的实验室里,我们更是可以轻而易举地制造出地球生命体内最复杂的物质。
一个例子是蛋白质分子的制造。我们已经讲过,蛋白质分子是生命现象最重要的驱动力,是绝大多数生物化学反应的指挥官。它们一般由少则几十个多则几千个氨基酸分子按照特定的顺序首尾相连而成。这条氨基酸长链在细胞内折叠扭曲,像绕线团一样,形成复杂的三维立体结构。蛋白质分子就像精密设计的微型分子机器,它们的功能往往依赖这种特别的三维结构。在一个蛋白质分子中,哪怕有一个氨基酸装配的错误、一丁点三维结构的变形,都可能彻底毁掉这台分子机器。
而在今天的实验室里,我们已经可以利用化学合成的方法,以 20 种氨基酸单体为原料,组装出这样的精密分子机器。
我们耳熟能详的中国科学家人工合成牛胰岛素的工作就是一个很好的例子。牛胰岛素是一个由 51 个氨基酸、两条氨基酸链组合而成的蛋白质分子。如今已经有商业化的机器可以完成这项任务(当然,受到技术限制,这条链还不能太长)。与此同时,我们也可以用更巧妙的方法,让细菌或者其他微生物来帮助我们批量生产想要的蛋白质分子。
另一个很好的例子则是 DNA(deoxyribonucleic acid,脱氧核糖核酸)——地球上绝大多数生命体用来存储遗传信息的物质。不管是直径只有几微米的细菌,还是人体内上百万亿个细胞,在这些细胞的深处,都小心翼翼地珍藏了一组 DNA 分子。对于每一个细胞而言,DNA 分子代表着来自祖先的遗传印记,也决定了它自己的独特性状。和蛋白质分子类似,DNA 也是由许多个单体分子首尾相连形成的链条。但是作为遗传信息的载体,DNA 分子的化学性质其实比蛋白质分子更简单。它的组成单元只有区区四种核苷酸分子。而且和蛋白质不同,DNA 的结构可以看作一维线性的:四种核苷酸分子的排列顺序形成了某种“密码”,记载着决定生物体性状的信息——从豌豆种子的颜色,到人类的相貌、身高和智力。我们在接下来的故事里会讲到,DNA 密码的书写规则其实很简单,三个相邻的核苷酸形成一个密码子,决定了蛋白质分子中一个氨基酸的身份。
我们现在已经可以用化学合成的方法组装出一段 DNA 分子,或者动用天然存在的 DNA 复制机器——DNA 聚合酶——组装 DNA 分子。在美国科学家克雷格 • 文特尔(Craig Venter)的实验室里,人们甚至已经可以合成一种微生物(丝状支原体)的整套 DNA(见图 2-1),并用这段长达 107 万个核苷酸分子的环形 DNA 彻底替代了丝状支原体原本的遗传物质。这项成就被称为“合成生命”的起点。而如果仅仅考虑合成 DNA 的长度,人类还可以走得更远。例如,2017 年初,美国哥伦比亚大学的科学家人工合成了总长度达到 1440 万个核苷酸分子的 DNA 链,并且利用 DNA 编码规则,在里面存储了一整套计算机操作系统和一部法国电影!
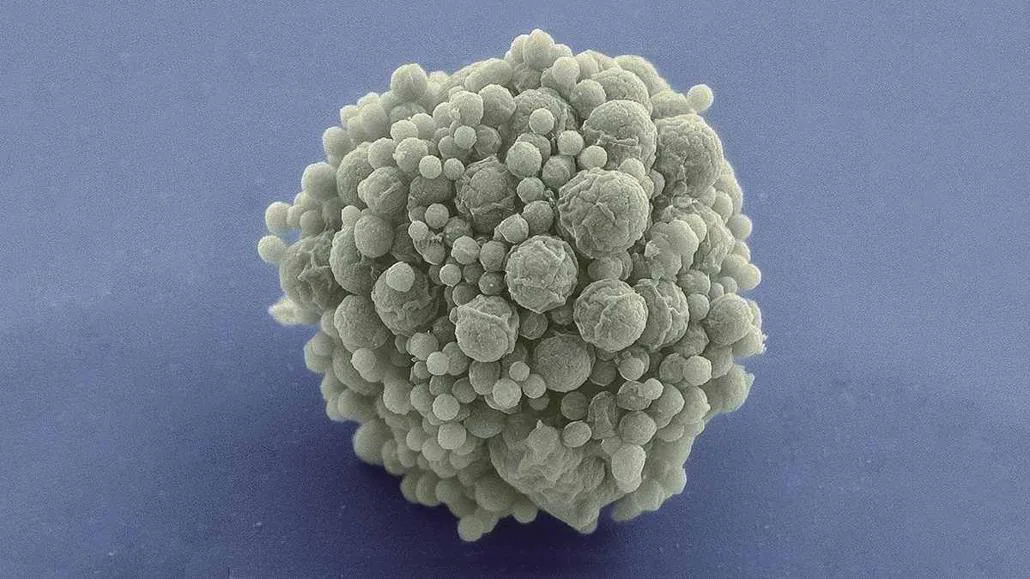
能在实验室创造如此复杂的生命物质,那生命的本质就此得到解释了吗?并没有。
尽管从尿素合成、米勒 - 尤里实验到人造蛋白质和 DNA,人类制造复杂生命物质的能力得到了飞速提升,但这些进展并没有真正帮助我们理解生命是什么以及生命从何而来的问题。
因为常识告诉我们,一大堆生命物质简单地混在一起,并不会自然地变成生命。一瓶蛋白粉不会自己变成花花草草——即便混了 DNA 进去也不行。反过来,当生物死亡的时候,组成它的生命物质可能原封不动地保留下来了,但是生命现象却仍然不可逆转地消失了。换句话说,生命物质和生命现象之间一定存在着一条虽然不为人知、却难以逾越的界限。
这条界限在哪里呢?
为了说明这个问题,我们不妨先考虑一个相对简单的情形。通过米勒 - 尤里实验我们知道,在远古地球的环境中,自发出现诸如氨基酸和核苷酸这样的有机小分子应该并不是特别困难。但是根据上面的描述,在生物体中,大量的氨基酸和核苷酸要按照某种特定顺序组装成蛋白质和 DNA 分子才能发挥真正的生物学功能。只有这样,蛋白质分子才能折叠成三维的分子机器,推动生物化学反应的进行;也只有这样,DNA 分子才能形成长链,存储复杂的遗传信息。因此我们可能更需要问的问题是:在远古地球的环境里,氨基酸和核苷酸分子自发连成长串,是不是件容易的事情?
不是。让氨基酸和核苷酸单体分子组织在一起变成蛋白质和 DNA 链,是一件非常困难的事情。
我们可以从几个不同的角度理解这种困难。首先是从能量角度。在地球生命的体内,把单个氨基酸串在一起形成蛋白质需要消耗很多能量。蛋白质是按照氨基酸顺序进行装配的,场面有点类似组装汽车的流水线。每个氨基酸单体首先要被机械手抓取,然后准确地安放在上一个氨基酸的旁边,最后组装好的半成品蛋白质再沿着流水线向下移动一格,腾出空间,让机械手装配下一个氨基酸。粗略估计一下,一个细胞中 95% 的能量储备都用来支持蛋白质组装了!
其次是从信息角度。无论是蛋白质还是 DNA,它们的组装是有着严格的顺序的。把一堆氨基酸或者核苷酸分子随意地拼接在一起是没有意义的,这样组装出来的蛋白质和 DNA 在绝大多数时候什么事情都干不了。换句话说,如果你手里有一堆氨基酸和核苷酸单体分子,每次抓一把丢进魔法师的礼帽里让他们随机拼接,可能试到地球消失的那一天也拼不出生物学上有意义的蛋白质和 DNA 来,其难度大概和猴子随机敲键盘打出莎士比亚的《哈姆雷特》差不多。
其实说到这里,有些敏锐的读者可能会意识到,能量和信息说的其实是同一件事。按照我们这个世界运行的基本原理,从混乱(单个氨基酸和核苷酸的混合物)中产生秩序(氨基酸和核苷酸按照特定顺序组装起来),本身就是极其困难的事情。
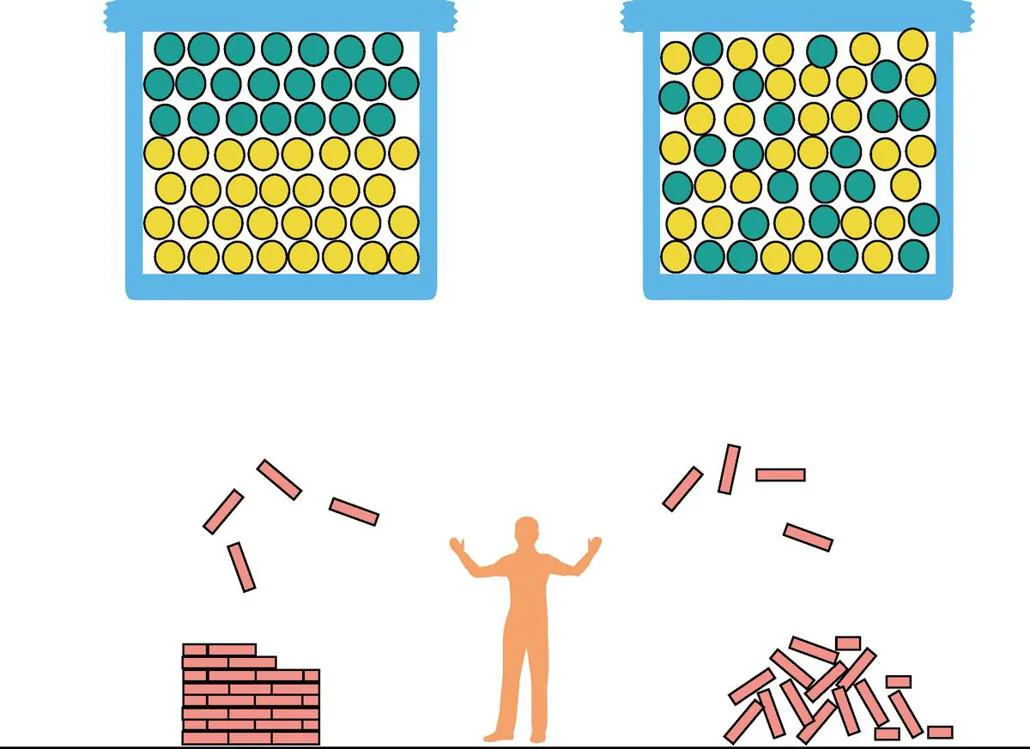
依据热力学第二定律(见图 2-2),任何一个孤立系统的混乱程度——物理学家更喜欢用“熵”这个物理量来表述——总是在增大的。通俗的解释就是,如果无人照管,高楼大厦会被风雨侵蚀慢慢破败,乃至倾颓成砖头瓦砾;一个崭新的玻璃杯在使用过程中会慢慢磨损划伤,最终在一次意外中碎成玻璃碴。当然了,在混乱度持续增大的历史潮流中也可以有浪花和逆流:猴子如果敲击键盘足够多次,也能凑巧一次拼出莎士比亚的剧本;给足时间和空间,物质颗粒在亿万次的随机碰撞中也完全可能偶然拼凑出生命现象来。但是这样随机诞生的生命一定是昙花一现的。在热力学第二定律的指挥下,这座随机诞生的生命大厦,也会像一座无人维护的高楼一样,逐渐陈旧下去,直到墙皮剥落,窗棂朽坏,梁柱倾颓。
以负熵为生
也许你会说:砖头变成大厦有啥不可能的?我们完全可以想象有那么一台“建筑师”机器人,能够按照预先存入的建筑蓝图,有条不紊地搬运砖块,搅拌水泥,上梁装瓦,不就能盖楼了吗?虽然我们现在还造不出来这种机器人,但是理论上是非常可行的啊!今天很多工厂生产线上的机器臂,其实就已经在为我们这样制造汽车、电冰箱等各种各样的复杂玩意了。有了这样一台机器人,不管是建新楼还是维护老楼,还不是手到擒来的事情吗?
没错。热力学第二定律确实给生命现象的稳定存在开了一个小小的口子。如果存在外界能量的注入,一个局部系统的混乱度确实也可以下降而不违反热力学第二定律。这也正是薛定谔在《生命是什么》一书中的名言“有机体以负熵为生”。那么,是什么能量驱动了这台建筑师机器人工作,装配出复杂的蛋白质和 DNA 分子,从无到有地修筑起生命大厦呢?
当然了,在这个宇宙里、这颗星球上并不缺乏能量。从一亿五千万千米外远道而来的太阳光是取之不尽的能量来源。直到今天,全部地球生命所能利用的太阳能加在一起,也仅是抵达地球的太阳能总量的千分之一。在大洋底部,从岩石裂缝中喷涌而出的热泉不光带来了地球深处的热量,也带来了来自地底的化学物质:氢气、硫化氢、甲烷、氨气,等等。这些物质与周遭的海水迅速反应,也释放出了大量的能量。
但是这些环境中的能量究竟是如何被生命现象所利用的呢?或者说,如果真的存在生命大厦建筑师的话,它们是怎样被这些环境中存在的能量所驱动,利用环境里现成的砖头瓦块,建造生命大厦的呢?
20 世纪初,一群生物学家开始关注这个问题。他们关心的正是生物体内各种各样的现象究竟是怎么被驱动的。
他们首先关注的对象是动物肌肉的运动。这是一个非常自然的选择,毕竟,没有什么比肌肉强有力的伸缩更能直观反映生命现象所需的能量来源了。
人们很快确认,肌肉收缩应该是某种化学反应驱动的。德国科学家奥托 • 迈尔霍夫(Otto Meyerhof)和阿奇博尔德 • 希尔(Archibald Hill)利用精密的化学测量方法证明,培养皿里的青蛙肌肉纤维仍然可以利用葡萄糖作为能量进行持续收缩。在此过程中,葡萄糖分子被转化成一种叫作乳酸的物质,就是那种能让人在剧烈运动之后感觉肌肉酸痛的物质。
看起来,葡萄糖转化为乳酸的化学反应过程似乎能够释放出生物体可以利用的能量来驱动肌肉收缩。更美妙的是,作为能量源头的葡萄糖本身并不难得,动物完全可以从食物中获取。要知道,在面包、米饭、玉米、土豆里,最不缺的就是由葡萄糖分子聚合而成的淀粉。
因此接下来的问题就清楚了:在葡萄糖转化成乳酸的化学反应中,能量是怎样释放出来的,以什么形式存在,最终又是怎样被转移到各种生物过程(例如肌肉收缩)中去的呢?
到 20 世纪 40 年代,随着人们开始了解各种各样完全不同的生物过程——从青蛙肌肉的收缩到乳酸菌的呼吸作用——人们开始意识到,对于地球现存的所有生物来说,不管长相有多么不同,不管是长在高山还是深海,不管是肉眼看不见的细菌还是体形巨大的动物植物,对能量的使用方法其实都是完全一样的。
在生物体内,化学反应释放的能量首先被用来合成一种叫作三磷酸腺苷(adenosine triphosphate,ATP,见图 2-3)的分子。之后这种蕴含能量的分子再去驱动各式各样的生物化学反应。通俗地说,ATP 就是地球生命通用的能量“货币”。
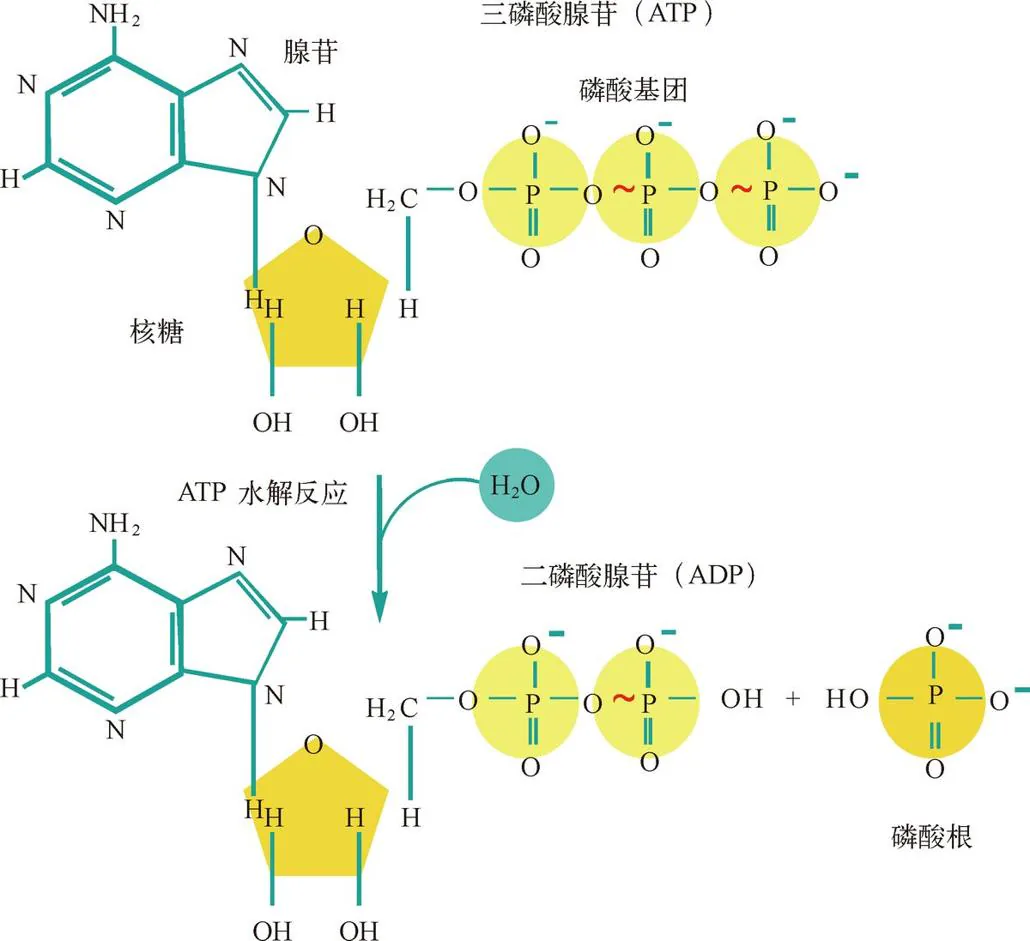
之所以叫它“货币”,是因为这种物质和货币一样,有一种奇妙的自我循环的属性。我们知道,货币的价值是在流通中体现的:需要买东西的时候,我们用货币交换商品;需要货币的时候,我们再用劳动或者资产换取货币。在此过程里,货币本身不会被消耗,只是在生产者和消费者之间无穷无尽地交流。和货币一样,ATP 分子也不会被消耗,它只会在“高能量”和“低能量”两种状态里无休止地循环往复,为生命现象提供能量。实际上在人体中,每一个 ATP 分子每天都要经过两三千次消费 - 生产的循环。当生命需要能量的时候,ATP 可以脱去一个磷酸基团,变成二磷酸腺苷(adenosine diphosphate,ADP,见图 2-3),蕴含在分子内部的化学能就会被释放出来。而反过来,当能量富余的时候,ADP 也可以重新带上一个磷酸基团,变回能量满满的 ATP。这个属性是不是很像我们日常生活中使用的货币?
而我们当然也能立刻想到,货币的出现是人类经济发展的重要里程碑。有了货币,我们就不需要总是拿山羊兑换斧头,用谷物兑换兽皮了。我们可以把所有富余的货物兑换成货币存储起来,然后在需要的时候购买急需的货物。
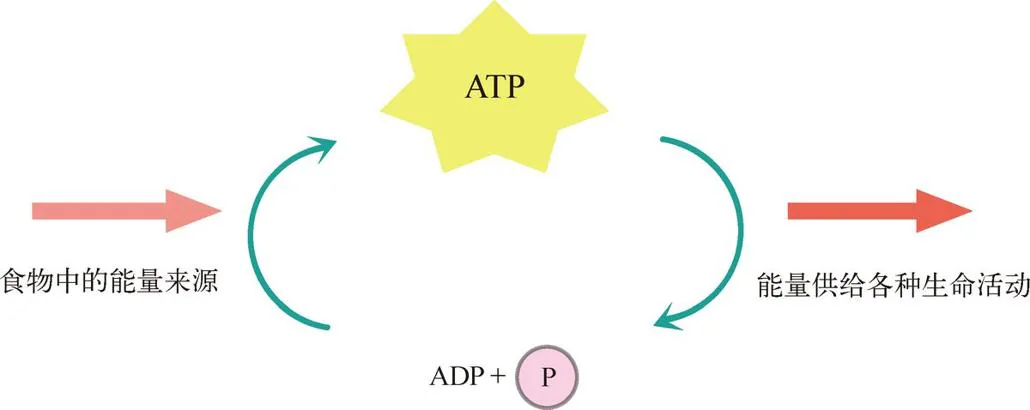
类似地,“能量货币”的出现也是生命演化历史上的一次飞跃。有了通用的能量货币 ATP,地球生命就可以将环境中的各种能量——从太阳能、化学能,到来自食物的能量——兑换成 ATP 储存起来,然后供给生命活动的各个环节了(见图 2-4)。换句话说,ATP 大概就是生命大厦建筑师所需的柴油和电力。只要再进一步,解释一下地球生命到底是如何生产能量货币 ATP 的,生命大厦建筑师的真相就清楚地揭示在我们眼前了。
更让所有人兴奋的是,既然 ATP 是地球现今所有生命的通用能量货币,那么一个顺理成章的推测就是,地球生命的共同远祖也一定是用 ATP 为自己提供能量的。既然如此,如果我们真的能够解释清楚 ATP 到底是怎么被生物体生产出来的,也许就能够猜测出,我们的祖先在大约 40 亿年前最初在地球上出现的时候,到底是什么模样的!
初看起来,情形确实是值得乐观的。早在 20 世纪初,人们就已经知道在肌肉收缩的过程中,葡萄糖可以变成乳酸并释放能量。后来人们意识到,这个过程其实和巴斯德研究过的啤酒变酸的过程是一回事:一个葡萄糖分子转变成两个乳酸分子,同时产生了两个 ATP。也就是说,高等动物的肌肉细胞和会让啤酒变质的微生物(后来知道是乳酸菌)居然共用了同一套 ATP 产生机制,而且这个机制是一个纯粹的化学反应过程(见图 2-5)。
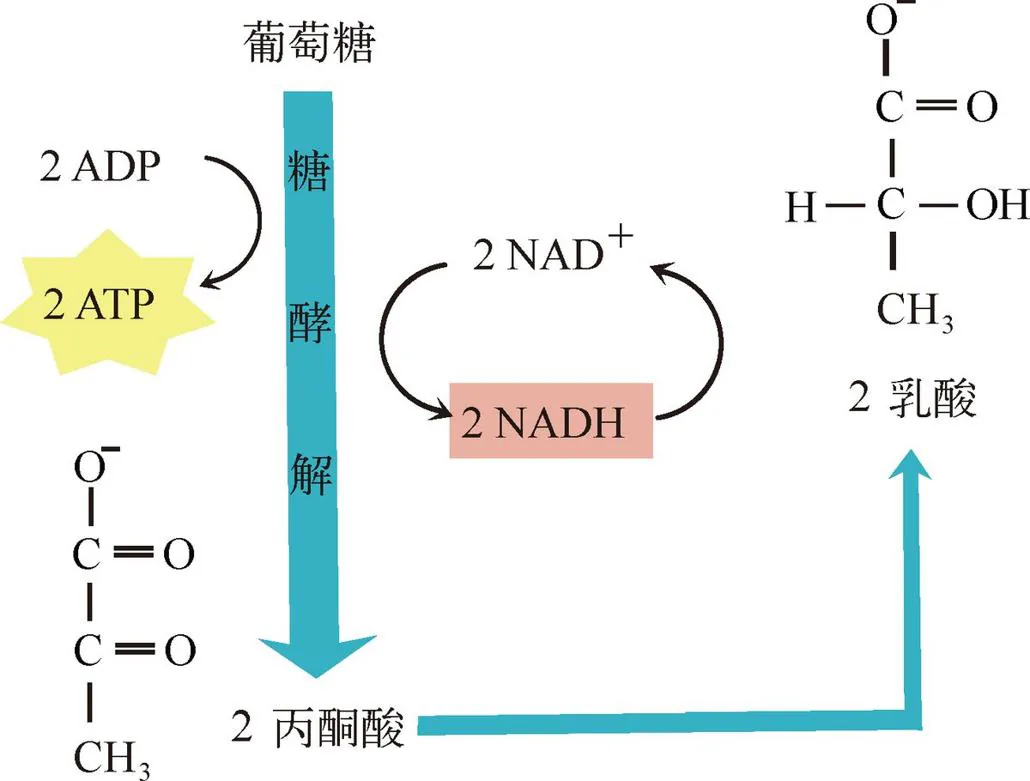
之后,人们又陆续发现了更多产生 ATP 的化学反应过程。比如,巴斯德研究过的啤酒酿造,其实就是某些微生物(酿酒酵母)将一个葡萄糖分子转化为两个酒精加两个二氧化碳,同时伴随产生了两个 ATP 分子的过程。自然界还有很多奇奇怪怪的微生物,甚至还能够利用环境中的无机物(例如硫化氢和铁离子)来生产 ATP。
因此这样看来,为生命大厦的建筑师找到能量来源似乎是水到渠成的事情了。无非是某些营养物质——可以是葡萄糖这样的有机物,也可以是硫化氢这样的无机物——通过化学反应释放能量,合成 ATP,然后 ATP 再去为各种各样的生物化学反应提供能量的过程嘛。
当然,实际情况要比这个解释“稍微”复杂一点。就拿葡萄糖为例,它的潜力绝不仅仅是区区两个 ATP 货币。在氧气充足的条件下,一份葡萄糖分子能被彻底分解为二氧化碳和水。如果核算一下在此过程中化学键的变化,释放出的能量理论上能生产多达 38 个 ATP 分子。也就是说,生物学家还需要解释这多出来的 36 个 ATP 分子究竟是怎么从葡萄糖里变出来的,才算是完全揭示了生命现象的能量来源问题。
但是看起来无论如何,最终答案的揭晓似乎仅仅是个时间问题了。一个葡萄糖分解为乳酸或酒精能够制造两个 ATP,那么无非是乳酸或酒精继续分解成水和二氧化碳,在此过程中释放能量制造剩下的 36 个 ATP 而已。我们完全可以设想这样的化学反应过程:
葡萄糖→乳酸→ X + Y → Z + W →…→水 + 二氧化碳
在每一步反应中,化学键的拆装释放出的能量可以制造若干个 ATP 分子。那么最终无非就是一个简单的数学问题而已:只要每一步反应制造出的 ATP 分子数加起来等于 38 就可以了。
化学渗透:生命的微型水电站
结果这个看起来简单的数字游戏,让生物学家从 20 世纪 40 年代一直忙活到 20 世纪 60 年代,竟然还是无从着手。
这个游戏最让人迷惑的地方在于,随着实验条件的变化,每个葡萄糖分子产生的 ATP 分子数量居然不是恒定的。发挥好的时候,能量传递得滴水不漏,每个葡萄糖分子都被彻底分解,可以制造出 38 个 ATP 货币,恰好等于理论估计的最大值。但是发挥不好的时候,能制造 30 个左右的 ATP 就算是幸运的了,低到 28 个也不稀奇。更要命的是,当大家试图精确测量 ATP 的产出效率的时候,还经常发现这个数字居然不是整数,而是有整有零的!也就是说,在同样一个反应体系里,每个葡萄糖分子分解释放能量的效率还可能不一样!
这就太不可思议了。制造每一个 ATP 所需要的能量是清清楚楚的,在化学反应中,每一个化学键的拆开和组合所能释放或者消耗的能量也是可以精确测量的。那么按理说,在同样的实验条件下,一个葡萄糖能生产出的 ATP 数量难道不该是一个恒定的整数吗?
生物学家当然不甘心在如此接近生命秘密的地方停下脚步。在那 20 年里,他们尝试了不计其数的解决方案,测量了无数次葡萄糖分解的化学反应常数。在解释生命活动能量来源的“最后一公里”征程上,不知道留下了多少前仆后继的生物学家的悲伤和无奈。
到最后,这个问题在 20 世纪 60 年代被一位天才科学家用一种匪夷所思的方式圆满解决了。天才的名字叫彼得 • 米切尔(Peter Mitchell,见图 2-6),而他提出的解决方案叫作化学渗透(chemiosmosis)。简单来说,米切尔的宣言是,生物体制造 ATP 的过程根本就不是个化学问题!你们在化学键的拆装里寻找答案,压根儿就是误入歧途。
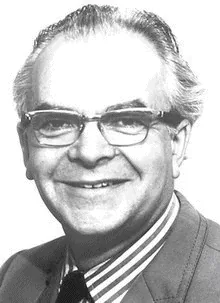
彼得 • 米切尔的一生就是一部传奇。1920 年出生,家境优渥,受到了良好的精英教育。31 岁获得博士学位,35 岁到爱丁堡大学任教,这一段人生旅途一帆风顺。但是 1961 年他在 41 岁的时候发表了惊世骇俗的化学渗透理论,从此不见容于主流学术界,甚至不得不半被迫地在 1963 年辞去了教职,回到乡下,把精力主要花在整修他的乡间别墅上。而在 1965 年,不甘就此沉沦的他自掏腰包,在自己的乡间别墅成立了一家彻底的民间科学机构——格莱恩研究所(Glynn Research Laboratories)——继续为他的化学渗透理论寻求证明。在科学研究之外,米切尔还经常饶有兴致地用他的化学渗透理论来解读社会现象。1978 年,他的理论帮助他加冕诺贝尔化学奖,在演讲中,他说了这么一句意味深长的话:“伟大的马克斯 • 普朗克说过,一个新的科学想法最终胜利,不是因为它说服了它的对手,而是因为它的对手最终都死了。我想他说错了。”
这是一个远在传统生物学家想象力之外的全新世界。米切尔提供的解释其实很像中学物理课本里讨论过的一个场景——水力发电站。在米切尔看来,生物利用营养物质兑换能量货币 ATP 的过程,其实就和人们利用水力发电的过程类似。
我们知道,一般来说,夜间的用电量总是要比白天小得多。毕竟灯关了,广播停了,大部分工厂也都下班了。因为供过于求,相比白天的电价,晚间用电总是要便宜不少。因此有些水电站就利用这个时间差来蓄能发电赚取差价:白天的时候,水电站开闸放水,水库中高水位的蓄水飞流直下,带动水力发电机涡轮旋转,重力势能转化为电能。而到了晚上,水电站就利用比较便宜的电价反其道而行之:开动水泵,把低水位的水抽回坝内,将电能重新转化成重力势能,供白天发电使用。
在米切尔看来,辛辛苦苦地去寻找什么未知的化学反应,压根儿就走错了方向!制造 ATP 的过程和电站蓄能发电的原理是一样的。电站蓄能发电可以分成两步,首先是晚间用电抽水蓄能,然后是白天开闸放水发电。而在生命体内也是一样分成两步,只不过能量的存储形式不是电而是 ATP;往复流动产生能量的不是水而是某些带电荷的离子(特别是氢离子);筑起大坝的不是钢筋混凝土而是薄薄的一层细胞膜;水坝上安装的水力发电机不是傻大黑粗的钢铁怪物,而是一个能够让带电离子流动产生 ATP 的蛋白质机器罢了。
这个过程可以简单地描述为:首先,生命体利用营养物质(特别是葡萄糖)的分解产生能量,能量驱动带正电荷的氢离子穿过细胞膜蓄积起来,逐渐积累起电化学势能。之后,在生命活动需要能量的时候,高浓度的氢离子通过细胞膜上的蛋白质机器反方向流出,驱动其转动产生 ATP。
1961 年,米切尔在著名的《自然》杂志发表了这个奇特的理论。可是他的整篇文章除了猜测和推断之外,没有给出任何实验数据的支持。生物学家的反应可想而知——水电站?蓄能发电?请问你,你说的水泵是什么?你说的发电机又长啥样?你不是还说水坝?有水坝就有水位差,你给我展示一下看看!被群起而攻之的米切尔甚至一度被逼得在学术界待不下去,只好辞职回家侍弄花草,还顺手整修了家乡的一座乡间别墅。
但是和古往今来那些命运悲惨的政治异类、宗教异类、文艺异类不一样,科学探索有一个亘古不变的原则保护了米切尔这个科学异类。这个原则就是,再大牌的权威、再传统的主张、再符合直觉的世界观,都必须符合实验观测的结果,否则没有力量救得了它。
很快,大家开始意识到米切尔这个离经叛道的假说的价值了。
就像米切尔的微型水电站模型所预测的那样,人们发现,在动物细胞的能量工厂——一种叫作线粒体的微型细胞机器中,确实存在极高的氢离子浓度差。跨越线粒体内层膜,仅仅几纳米的距离跨度就有上百毫伏的氢离子浓度差,这个差别堪比雷雨云和地面之间的电荷差别。这个发现开始动摇部分反对者的信心:因为除了米切尔理论中的假想水坝,实在难以想象细胞为什么需要小心翼翼地维持如此危险的高电压。
与此同时,在米切尔的模型里,葡萄糖飘忽不定的 ATP 生产效率压根儿就不再是个问题了。要知道,抽水蓄能和开闸发电,本质上是完全独立的两件事。抽水蓄能之后,到底开不开闸、开多久、放多少水、发多少电,那都是水电站可以自由决定的事情了。如果当天需求大,电价高,就多放一点水来发电;否则就少放一点,等过几天再说。细胞内的微型水电站也可以根据细胞内的能量需求来决定生产 ATP 的效率。28~38,这组让生物化学家无比抓狂的数字,就这么轻松地得到了解释!
而最具决定性的证据也许是米切尔推测的那台水力发电机——这个一开始被错误地命名为“ATP 酶”,后来一般被称作“ATP 合成酶”的蛋白质——在 1994 年终于露出了庐山真面目。这一年,米切尔的英国同行约翰 • 沃克(John Walker)利用 X 射线衍射技术看清了 ATP 酶的真实结构(见图 2-7),它甚至比人们最激进最科幻的想象还要美!这个微型蛋白机器的功能和外表都酷似一台真正的水力发电机。它的核心部分是由三个叶片均匀张开构成的“齿轮”,这个齿轮和一个细管相连。当高浓度的氢离子汹涌通过细管时,就会带动叶片以每秒钟上百次的速度高速旋转,从而生产出一个个 ATP 分子来。
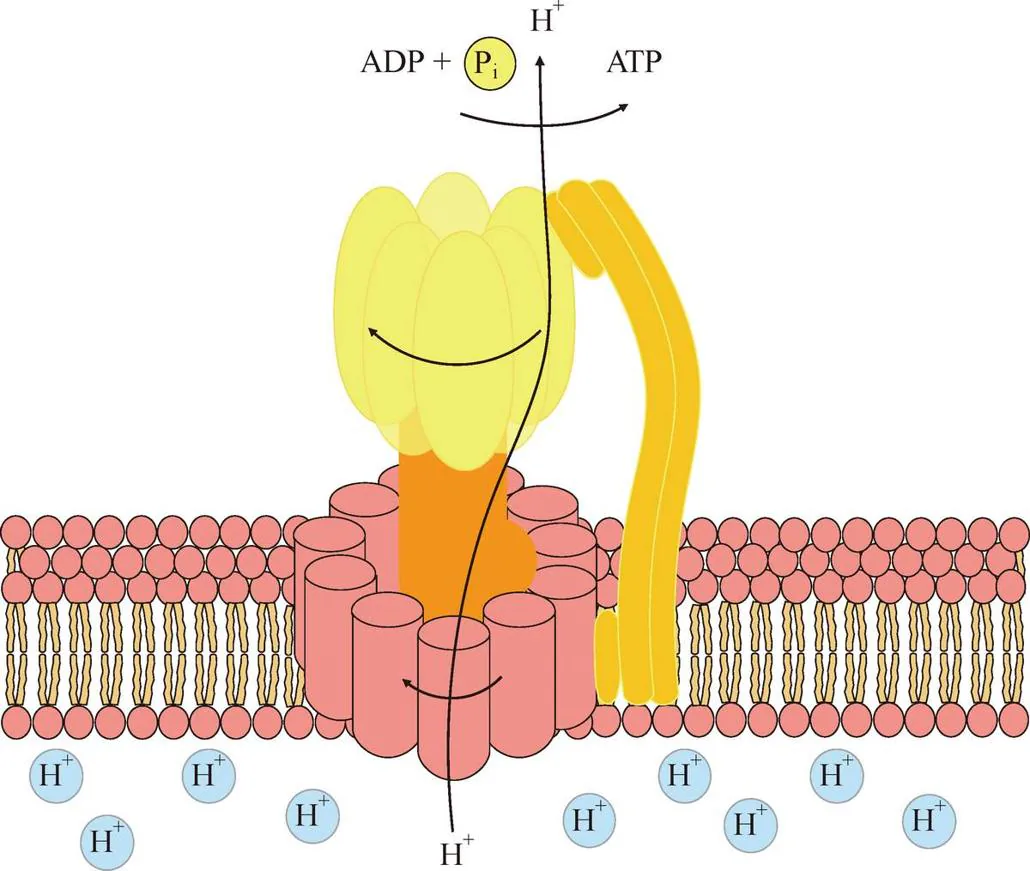
这可能是对人类智慧毫无保留的奖掖:看吧,根据几百年间积累的经典力学和电磁学知识,人类设计出了水力发电机,而它居然和大自然几十亿年的鬼斧神工不谋而合。
这当然也可以看作对生命奇迹的礼赞:不需要设计蓝图,不需要人类智慧,在原始地球的某个角落,居然诞生了让人叹为观止的伟大“工业”设计!
生命来自热泉口
至此,生命大厦的能量来源问题得到了圆满的解决。
不是说建造生命大厦需要能量吗?不是说砖块已经齐备,就差动员建筑师来建造大厦了吗?化学渗透理论指出,这一切其实没那么复杂。只要给我一座水坝和一套发电机就可以了。这座水坝可以非常粗糙简易,只需要能够部分地隔绝物质流动,从而像水坝蓄水那样保持住某种物质的浓度差就行。有了稳定的浓度差,就能够稳定地蓄积电化学势能;而电化学势能就可以驱动发电机,为生命大厦的建筑师供应能量。
除了为生命大厦提供能量,化学渗透理论其实还有着更深远的意义。
我们不妨先暂时停下来问自己一个问题:地球生命为什么要用化学渗透这种方法来制造能量货币?
我们知道化学反应是可以产生 ATP 的,而且葡萄糖分解为乳酸、产生 ATP 的化学反应普遍存在于各种生物体内。那么地球生命为什么不遵循这种更稳妥、更精确的思路,在葡萄糖一步步分解的化学反应中获取能量,制造 ATP ?或者我们也可以反过来问这个问题。既然已经有了利用化学反应制造 ATP 分子的方法,今天的地球生命为什么仍然不约而同地继续选择借助氢离子浓度差生产 ATP ?
这个问题目前还没有一锤定音的答案。但是近来的一些研究提供了一些很有说服力的视角。
比如存在这样一个可能性:首先积累氢离子浓度,然后再利用氢离子的流动冲击 ATP 合成酶,这种看起来异常精巧的策略,可能反而是地球生命最早最原始的能量来源。2016 年,德国杜塞尔多夫大学的科学家威廉 • 马丁(William Martin)分析了现存地球生物 600 多万个基因的 DNA 序列,从中确认有 355 个基因广泛存在于全部主要的生物门类中。根据这项研究,马丁推测,这 355 个基因应该同样存在于现在地球生物的最后共同祖先(last universal common ancestor,LUCA,见图 2-8)体内,并且因为它们有着极端重要的生物学功能,从而得以跨越接近 40 亿年的光阴一直保存至今。在这 355 个基因里,赫然便有 ATP 合成酶基因的身影。与之相反,在现存地球生物体内负责驱动其他 ATP 合成途径的酶,例如催化葡萄糖分解为乳酸或酒精从而制造 ATP 的那些蛋白质,却不见踪影。
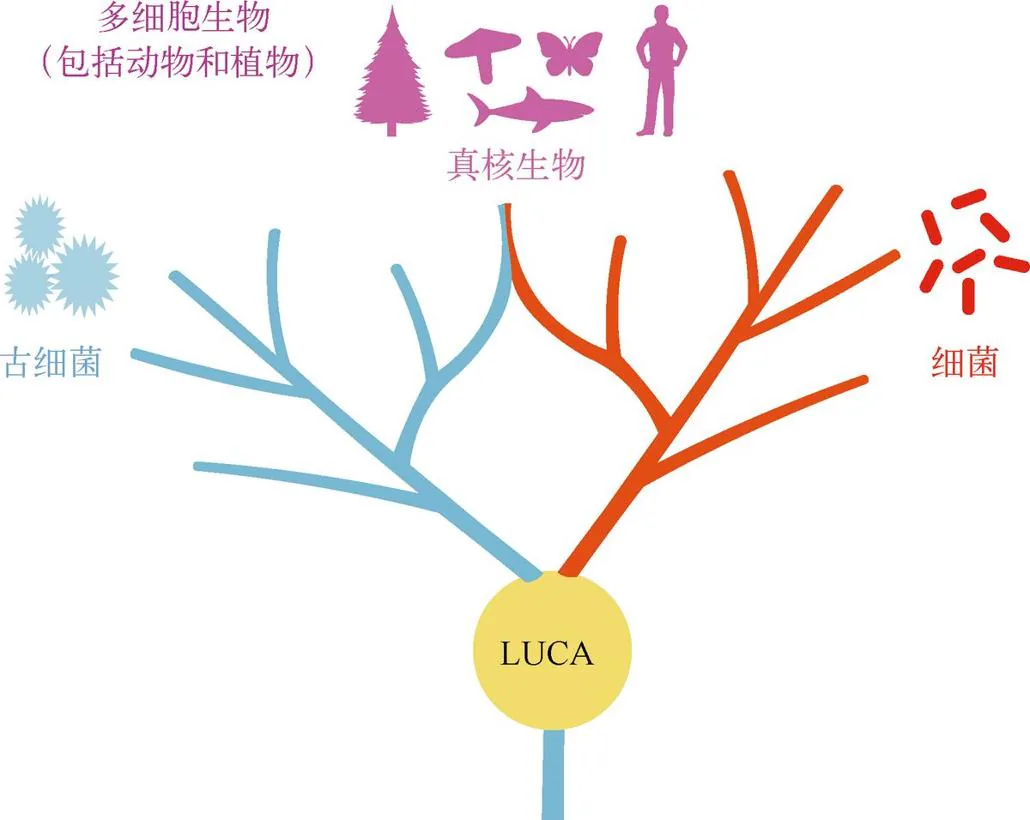
这就很有意思了,根据这个推论,地球生命的最初祖先已经掌握了利用氢离子浓度差制造 ATP 的能力。但是需要注意,祖先似乎没有掌握制造氢离子浓度的能力,因为在这 355 个基因里,并没有找到能够将氢离子从低水位泵向高水位的酶。也就是说,祖先只能被动地利用环境中现成的氢离子浓度差。
我们可以想到的是,在一个稳定的环境中是不可能存在什么稳定的氢离子浓度差的。其实在这样的环境里,任何物质都会逐渐混合均匀,就像在一杯水中滴入红蓝墨水,过不了多久水的颜色就会变成均匀的紫色。那么在远古地球环境里,怎么可能存在现成的氢离子浓度差呢?
答案也许来自深海。
2000 年末,科学家在研究大西洋中部的海底山脉时,偶然发现了一片密集的热泉喷口(见图 2-9)。这片被命名为“失落之城”(Lost City)的热泉与已知的所有海底火山不同,它喷射出的不是高温岩浆,而是 40~90 摄氏度的、富含甲烷和氢气的碱性液体。而碱性热泉能够提供几乎永不衰竭的氢离子浓度差!远古海洋的海水中溶解了大量的二氧化碳,应该是强酸性的。因此当碱性热泉涌出“烟囱”口,和酸性海洋相遇的时候,在两者接触的界面上,就会存在悬殊的酸碱性差异。而酸碱性差异,其实就是氢离子浓度差异。
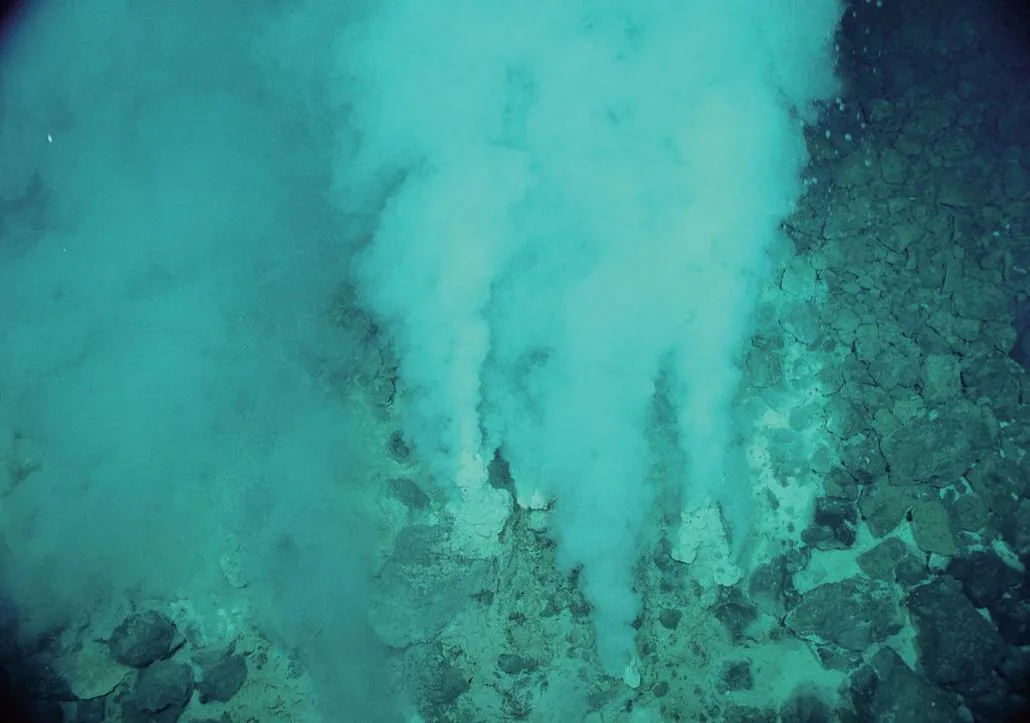
更奇妙的是,人们还发现,热泉烟囱口的岩石就像一大块海绵,其中布满了直径仅有几微米的微型空洞。因此在 2012 年,马丁和英国伦敦大学学院的尼克 • 连恩(Nick Lane)提出过一个很有意思的假说。他们认为,这些像海绵一样的岩石,其实可以作为原始水坝,维持氢离子浓度差。这样一来,化学渗透和生命起源两件看起来风马牛不相及的事情,居然有可能是紧密联系在一起的!
也许在远古地球上,正是在碱性热泉口的岩石孔洞中,氢离子穿过原始水坝的流淌,为生命的出现提供了最早的生物能源。我们的祖先正是利用这样的能源组装蛋白质和 DNA 分子,建造了更坚固的水坝蓄积氢离子,繁衍生息,最终在这颗星球的每个角落开枝散叶。换句话说,其实不是今天的地球生命不约而同地选择了化学渗透,反而是化学渗透催生了地球生命的出现。
而当我们的祖先掌握了利用化学渗透制造能量的技能之后,他们也就同时掌握了远离热泉口这块温暖襁褓的能力——因为祖先已经不再需要现成的氢离子浓度差和天然的岩石水坝来制造能量了。此时的他们拥有了能够运输氢离子的水泵,能够稳定储存氢离子的水坝,能够制造 ATP 的水力发电机,甚至还能将能量储存在诸如葡萄糖这样的营养物质中长期备用。
三四十亿年弹指一挥间,当今天的地球人类在饱餐一顿之后出门上班、穿上跑鞋开始运动、坐上飞船飞向茫茫太空的时候,在幕后默默支持我们的,仍旧是氢离子永不停歇的流淌和化学渗透闪烁的永恒光辉。