来源页 · 原书全文 · 第4章
细胞膜:分离之墙
保留王立铭原书正文、原段、注释和插图。推荐序分别保留撰写者身份;课程另行录入,不混入原书。
生命的外壳
对于地球生命来说,生命体和周围环境之间总是存在着不言而喻的清晰界限。皮肤和毛发包裹着人类的躯体,水里的鱼虾顶着闪闪发光的鳞片或者厚厚的硬壳,树木的躯干也围着斑驳嶙峋的树皮。很难想象会存在一种生命,它和环境之间有着缓慢过渡的边界。就像我们看不到人体的内脏飞得满房间都是,也不会看到树木若有若无的魅影笼罩成了一片树林。
在微观视角下,几乎所有的地球生命都是由一个或多个,乃至上百万亿个微小的细胞构成的。即便是不以细胞形式存在的病毒生命,也只有在进入宿主细胞后才能“活”过来开始自己的生命历程。细胞是构成地球生命的基本物理单元。细胞内外,生命和环境的界限不言而喻。
从某种意义上说,每一个细胞都可以看作一个有着自己独特生活经历和命运的生命体。祖先细胞的 DNA 分子在完成自我复制后各奔东西,携带着祖先的记忆,伴随着细胞本身一分为二,完成生命的繁衍复制。在每一个细胞内部,能量货币 ATP 驱动着各种各样生命活动的进行,它让红细胞吸满氧气在血管里畅游,让神经细胞释放高高蓄积的离子水位产生微弱的生物电流,让草履虫的纤毛轻轻摆动,让大肠杆菌修补外壳上破损的脂多糖。而到生命的尽头,细胞或因为外敌的入侵不幸罹难,或按照自身的生命密码启动自杀程序,曾经辉煌壮丽的生命大厦轰然倒塌,曾经严整有序的形态、结构和生物分子慢慢破损消亡。
马蒂亚斯 • 雅各布 • 施莱登(Matthias Jakob Schleiden)和西奥多 • 施旺(Theodor Schwann)是细胞学说的集大成者。1839 年,两人分别提出植物和动物都是由许多个微小的细胞组成的,细胞是生命的基本单元。尽管后世对于两位学者在细胞学说中的具体贡献一直存有争议,但是细胞学说无疑是还原和解释生命现象的重要飞跃。在细胞学说的视野里,包括人类在内的高等生物实际上和肉眼看不见的细菌并没有什么本质的区别,都受到相同物理化学规律的约束。
和宏观生命一样,细胞这种微观生命也是有清晰边界的(见图 4-1)。它们被一层仅有几纳米厚的脂类分子薄膜严密地包裹起来,薄膜内部是生机勃勃的生命活动,外部则是危险冷漠的外在世界。实际上,考虑到地球生命都是由数量不等的细胞构成的,我们完全可以认为这层薄膜才是生命和地球环境的边界。想到由仅仅几纳米的薄膜构成了人体的躯壳,让空气、水和我们身上的服饰不会轻而易举地深入我们身体内部,这种感觉真的有点怪怪的。
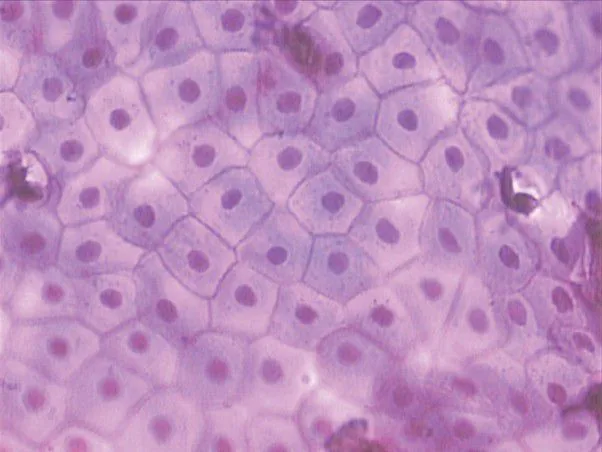
在逻辑上很容易想通这层薄膜的意义——它远比简单的一层物理屏障重要得多。
我们在前面讲过,能量和自我复制是生命从混乱无序的环境中萌发并万世长青的两个基本条件。换句话说,生命现象想要存在,必须在局部蓄积起足够浓度的能量(例如能量货币 ATP),然后用它驱动某种能够携带遗传信息的生物大分子(例如 DNA 和 RNA)的自我复制。那么可想而知,如果没有一层物理屏障的话,能量分子和遗传物质哪怕能够偶然出现,也会像在原始海洋里滴一滴墨汁一样,迅速稀释得无踪无迹。或者反过来说,从 46 亿年前地球形成开始,能量分子和遗传物质可能自发出现过千千万万次。但是必须再耐心等待 10 亿年,直到第一个原始细胞出现,为能量分子和遗传物质构造起“分离之墙”,并且从那一刻开始,始终包裹在每一个细胞和它们的后代周围,地球生命才真正有可能告别昙花一现的化学反应现象,稳定地存活下来,利用能量驱动生命活动,利用自我复制适应地球环境,开枝散叶一直到今天。
当然了,即便没有这层薄膜,化学家仍然可以设想出许多场合能够聚拢能量分子和遗传物质。比如,我们可以设想最早的生物化学反应并不是在海洋里进行的,而是固定在某种固体(例如海底矿床和火山)的表面,我们也可以设想岩石内部存在微小的孔隙,生命物质可以在孔隙里维持很高的浓度。但是不管是矿床还是岩石孔隙,都不会跟着生命自我复制的节奏扩张。生命的最终出现,仍然需要有一座分离之墙,一层生命自身能够制造和储备的薄膜。
不需要做任何观察和实验,我们也能轻而易举地推导出这层分离之墙具有许多有趣的性质。
首先,它必须是一种不溶于水的化学物质,否则就会在地球原始海洋里轻易地分崩离析。其次,它必须能够形成致密的结构,要是孔隙太大,各种物质能够自由进出,这层膜也就没有用了。而基于这两点,我们还能猜想出这层膜的第三个性质:它必须具备一定程度的通透性,能够让某些分子穿梭于细胞内外,例如氧气、营养物质、细胞产生的废物,等等。不溶于水、致密包裹、有选择透过性,考虑到地球原始海洋里并没有多少原材料可以选,按说生命这道分离之墙的性质应该昭然若揭了。
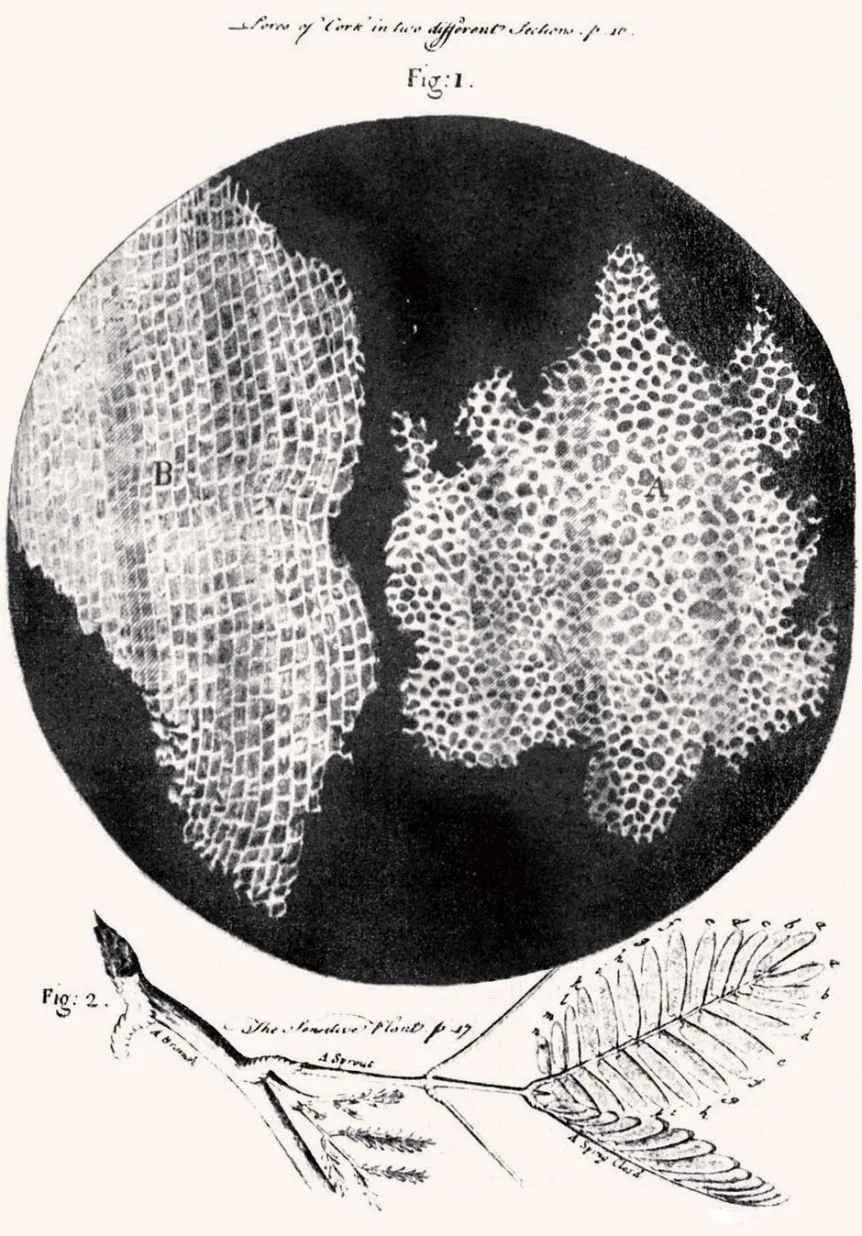
然而让人跌破眼镜的是,从英国科学家罗伯特 • 胡克(Robert Hooke)在显微镜下观察到植物软木标本里一个个蜂巢状的微小结构(见图 4-2)并于 1665 年提出“细胞”的概念 1,到 1972 年西摩 • 辛格(Seymour Singer)和加斯 • 尼克尔森(Garth Nicolson)提出目前被广为接受的细胞膜物质解释“流动镶嵌模型”,足足用了 300 多年的时间!
11665 年,胡克发表了巨著《显微术》。他在书中展示了在显微镜下观察到的软木标本图片,并把蜂巢状的结构命名为“细胞”(cell,意为“小室”)。我们现在知道,胡克图片中的蜂巢结构其实是植物的细胞壁,这是一种由多糖类物质形成的结构。细胞壁内部才是细胞膜。动物细胞没有细胞壁。
看见分离之墙
科学研究从来就不是一蹴而就的坦途,曲折反复、浴火重生是常态。但是无论如何,从知道有一层逻辑上必须存在的膜,到搞清楚这层膜到底是什么,300 年还是太长太长了,长到在对科学史盖棺定论的时候,我们必须对此给出一个合理的解释。
敏锐的读者可能已经猜到了:这个解释就是,这层膜实在是太薄了!厚度还不到 10 纳米,远远低于光学成像的理论极限分辨率 200 纳米。人类科学家再雕琢自己的光学显微镜镜片,也不可能看到这层膜的样子(胡克在软木标本中看到的蜂巢结构其实是细胞壁,一种植物细胞特有的坚硬外壳)。看都看不见的东西,天知道它存不存在?而在生物学家瞪大眼睛反复看,都没有看到传说中这层膜的样子之后,自然而然会有一批人转而开始考虑其他的可能性。比如,直到 20 世纪初,仍然有不少生物学家认为这层膜压根儿就是不存在的,细胞内的物质像胶水一样黏合在一起才不会破碎和稀释。这个解释现在看起来几乎是错误的,就算是每一个细胞内的物质可以按照这种方式聚集而不散开,怎么才能防止细胞和细胞之间的“胶水”黏在一起呢?这种解释仍然离不开一个在物理化学性质上截然不同的“分离之墙”。归根结底,生物学家还是败给了自己“眼见为实”的思维定式。
话说回来,要说服大家相信一个看不见摸不着的东西仅仅因为逻辑上的理由就必须存在,确实还是需要些勇气的。读者可能会想到一个类似的例子:物理学中“以太”的概念。而且别忘了,以太的概念最终被证明是多余的!
所幸从 18 世纪开始,生物学家观察到了一个很有趣的现象:把动物的红细胞从血液里提取出来,丢进各种各样的溶液中,如果溶液里盐分很足,细胞会缩成一小团;如果溶液里盐分很少甚至没有,细胞又会肿胀得很大。这个现象当然可以有各种各样的解释,但是最简单的解释就是把细胞想象成一个薄膜包裹的盛水口袋,水可以在薄膜两边自由地流动,但是盐分子不可以。如果外界环境盐分太足,就会形成外高内低的盐浓度差,也就是说,内高外低的水浓度差。因而水会顺着这种浓度差,从里往外渗出来,让口袋变小;反过来水就会渗进口袋,让口袋变大。
到了 19 世纪末,在检测了市面上能找到的数百种化学物质之后,英国科学家厄内斯特 • 欧福顿(Ernest Overton)发现,并不是把细胞丢在什么溶液里它都会像变戏法一样长大缩小的。各种各样的盐溶液都没有问题,但是如果换成脂类分子溶液(比如胆固醇),这种戏法就不灵了。那么根据上面的逻辑继续推论,我们还可以进一步猜测脂类分子也能自由通过细胞膜。这样在脂肪和水的环境里,细胞膜就像筛子一样,完全起不到“分离之墙”的作用,当然也就谈不上能控制细胞的大小了。在此观察的基础上,欧福顿天才地设想,这层薄薄的细胞膜可能本身就是由脂类分子构成的,特别是胆固醇和磷脂这两种脂类分子。
这个设想一举解决了我们关于“分离之墙”特性的猜测。大家都知道“油水不相容”,这是因为水分子带有强烈的极性,它的氧原子上带有强烈的负电荷,氢原子上则带有正电荷,因此水分子之间能够通过正负电荷的吸引形成稳定的结构。相反,大多数脂类分子的电荷分布很均匀,一旦放入水中,不仅不能和水分子形成电荷吸引,反而还会破坏水分子之间的稳定关系,就像把玻璃弹珠扔进一堆方方正正的乐高玩具中一样不合时宜。因此脂肪分子不溶于水,而且在水中还会自发聚集成团,尽可能减少表面积,减少暴露在水分子面前的机会。这样一来,由脂类分子构成的膜当然就不会在水中分崩离析,而且天然地形成致密的结构,包裹住细胞内的生命物质。
当然了,欧福顿的理论听起来头头是道,但是有一个相当致命的技术问题没有涉及。脂类分子构成的膜为什么不会动不动就突然崩塌,进一步收缩成更小更致密、表面积更小的球?要知道,既然脂类分子在水中的天然倾向是减小表面积,那自身聚集成一个实心球,把大多数脂肪都包裹起来岂不是最好的解决方案?
这个问题又过了 20 多年才得到完美的解决。1925 年,荷兰莱顿大学的科学家高特(Evert Gorter)和格兰戴尔(François Grendel)决定直接使用化学方法,把这层假想中的“分离之墙”提取出来,看看它们是什么——如果它们如欧福顿所说的当真存在的话。
根据欧福顿的理论,这层膜是脂类分子,因此可以用有机溶剂轻松提纯。然后,高特和格兰戴尔把从红细胞中提取的这些物质平铺到一杯水上,小心翼翼地拉成了一层膜。这个过程有点像把吃菜剩下的油倒进开水里,水的表面就会形成一层油光光的薄膜。然后他们发现,拉出这层膜的面积,排除掉实验误差,差不多正好是计算出的红细胞表面积的两倍!换句话说,细胞膜应该不是一层,而是由两层分子构成的(见图 4-3)。
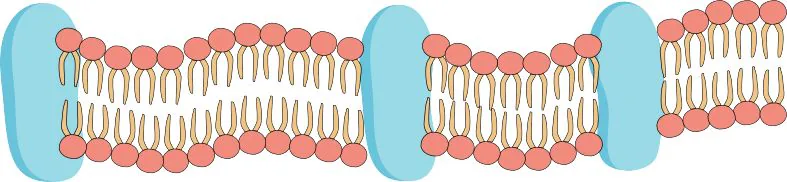
这时高特和格兰戴尔又想起了欧福顿理论中一个总是被人忽略的小细节。欧福顿预测,细胞膜的物质成分是磷脂和胆固醇,而这两种脂类分子都有一个异乎寻常的特性:分子骨架的绝大多数地方都是电中性的,因此天然排斥水分子。但是两种分子的顶端却恰好都有一个带有电荷的“头”,因此是可以和水分子亲密结合的。也就是说,这两种分子兼具了油和水的性质,头像水,尾巴像油。这样一来,这个双层膜的现象就很好解释了。两层膜对称排列,都是头朝外,尾巴朝内,那么分子骨架上电中性的部分被完全隐藏在了内部,而分子头部带电荷的部分又可以用来结合水分子,一举两得。这样的结构甚至比单纯用脂肪分子堆积一个实心小球还要稳定!
直到此时,对细胞膜的存在、细胞膜的特性、细胞膜的化学构成才真正取得了共识。高特和格兰戴尔的双分子层模型在此后经历过几次小的更正和改动,但是细胞膜的基本形态模型已经确定。实际上,尽管大家真正“看”到细胞膜是在那之后二三十年,20 世纪 50 年代电子显微镜足够进步的时候,但是真到那个时候,大家反而没有那么大惊小怪了——因为细胞膜必须存在、由磷脂和胆固醇分子构成、是一个双层膜的夹心结构这几个要点,在“眼见为实”之前就已经深入人心并写进教科书了。
实际上,这样一种细胞膜不光是逻辑上容易理解、实验上得到了证明,它还非常容易形成。最后一点对于解释地球生命的起源——也许包括宇宙许多生命形态的起源——非常重要。只要把一些具备类似兼具油水性质的分子放在水里,它们可以自发形成一层薄膜,包裹成一个空心球的形状。也就是说,只要在原始海洋里的某个地方,不管是终日喷涌的海底火山,还是狂风暴雨的海洋表面,某个化学反应能够批量制造出脂类分子,最早的细胞结构就可以自发形成,剩下的问题无非是怎么用这种结构把能量分子以及遗传物质包裹起来而已。
关于这一点,最动人心魄的证明来自地球之外。
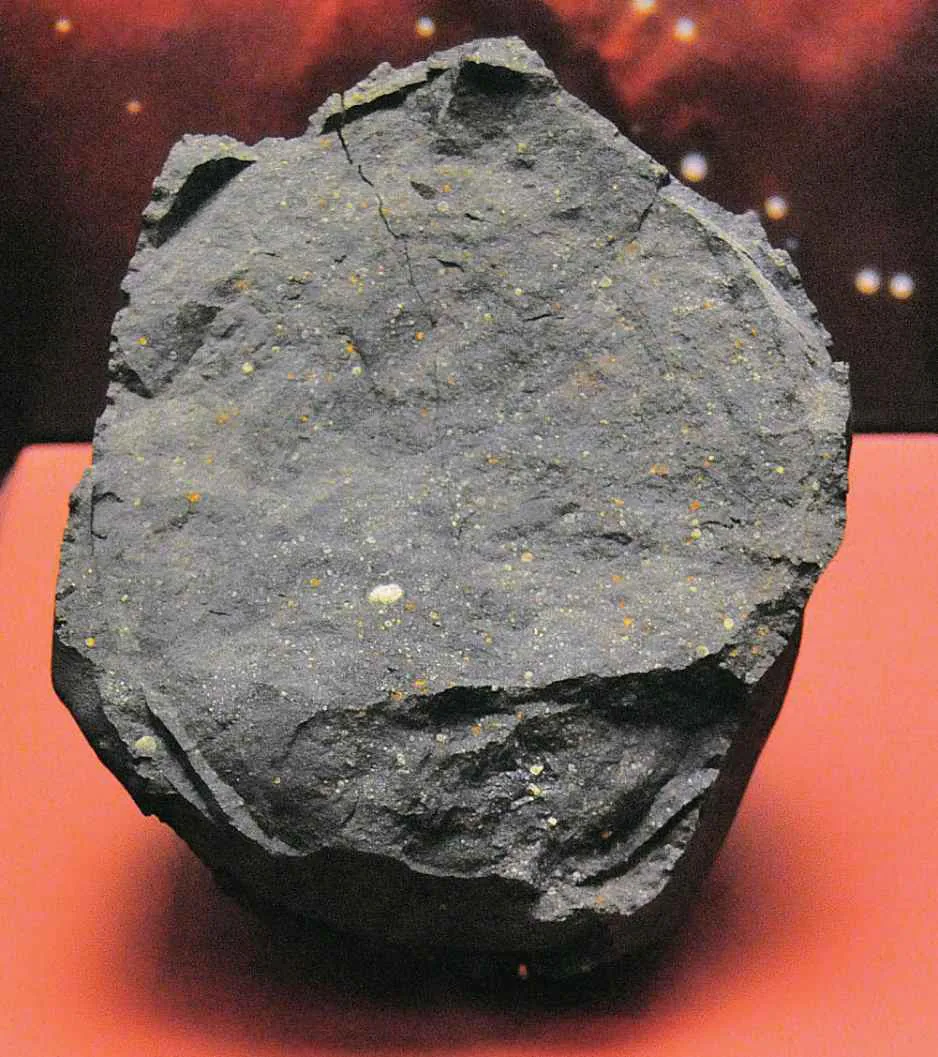
1969 年,一个巨大的火球从天而降,击中澳大利亚维多利亚州的莫奇森,留下腾空而起的蘑菇云。人们很快确认,爆炸来自一颗重达 100 千克的陨石(见图 4-4),它坠地产生的碎片散布在 10 多平方千米的地面。人们惊奇地发现,这颗陨石上携带了大量的有机物质——几十种氨基酸和脂肪分子,甚至还有能够形成 DNA 和 RNA 分子的嘌呤和嘧啶——这些物质和米勒 − 尤里实验的产物惊人地相似。
这些发现立刻引发了两种完全不同的解读。在一部分人看来,地球生命可能就来自这些从天而降的陨石,早期地球经历了密集的陨石雨轰击,来自天外的生命物质很可能足够多,因此构成了地球生命的物质基础。
而在另一部分人看来,莫奇森陨石的发现恰恰说明根本不需要把地球生命的尊严寄托于天外来客,既然陨石携带的物质如此接近米勒 − 尤里实验的发现,那么在早期地球海洋中,在雷鸣电闪和火山喷发中制造出地球生命所需的物质,应该非常简单。地球生命的出现根本不需要借用什么天外陨石的假说。
到了 1985 年,关于莫奇森陨石的研究又一次震动了科学界。美国人大卫 • 蒂莫(David Deamer)证明,从陨石中提取出来的脂类分子也可以自发形成类似于细胞膜的结构。如果说在此之前,借由米勒 − 尤里实验和对莫奇森陨石的研究,科学家已经不怀疑生命物质出现在宇宙中是一件平淡无奇的事情,那么蒂莫的发现说明,就连第一个真正的生命——细胞——的出现可能都没有人类想的那样复杂,它同样可能是一件自然而然、平淡无奇的小事件!
还记得我们前面故事里提到的生命 4.0 吗?有了能量,有了遗传物质,有了细胞膜。地球生命起源的三大要素就此功德圆满。
能量驱动生命活动,保证高度有序的生命能够克服热力学第二定律的诅咒,在混乱多变的环境中生存下来。自我复制的生命用数量战胜意外,用自身变化应对环境变化,确保生命不会因为意外事故或者墨守成规而凋谢。细胞膜这道“分离之墙”,为能量分子和遗传物质提供了周全的保护,让它们能够稳定地蓄积和保存,并且让两者足够接近,能量分子可以方便地驱动遗传物质的自我复制,而遗传物质也可以更方便地指挥蛋白质分子(例如 ATP 合成酶)的制造,从而制造出更多的能量。
细胞的出现让生命现象突然变得异常丰富多彩。从纳米尺度的 DNA、RNA 和蛋白质分子,到微米尺度的细胞,生命现象的物理尺度增大了上千倍。这也意味着生命的复杂程度上升了数十亿倍(上千倍的三次方)!我们可以如此设想,在细胞出现之前,生命现象只能由一个纳米尺度的生物大分子——不管是蛋白质还是 RNA 核酶——来独立推动。而在细胞膜最后“合龙”、制造出一个微米级别直径的封闭空间后,数不清的生物大分子就有机会在近距离内传递能量,合作分工,完成复杂的工作。
但是,在我们开香槟庆祝生命之花绽放之前,还有一个非常大的问题没有解决。
第一个细胞是怎么来的?
在本章故事的一开始,我们就说到细胞“分离之墙”必须具备三个性质:不溶于水,致密包裹,选择性通透。磷脂双层膜完美地解决了前两个问题。但是选择性通透呢?或者说得更具体一点,就像欧福顿实验证明过的那样,脂质分子可以轻而易举地穿越细胞膜,但是对生命至关重要的其他物质呢?能量物质葡萄糖怎么进入细胞?细胞自身无法合成的金属离子怎么进入细胞?更要命的是,水分子又是怎么进出细胞的?要知道,水分子可是脂肪分子的天生对头啊。
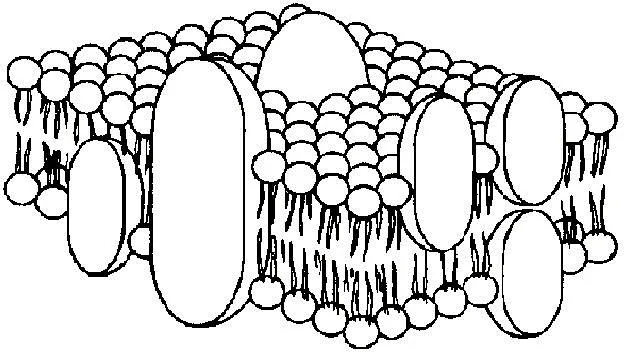
在今天的地球生命中,这个问题解释起来有点复杂,但是原理上并不难懂。简而言之,细胞膜上“镶嵌”着各种各样的蛋白质分子,它们可以帮助物质进行跨细胞膜流动,或者说它们能够形成一个狭窄的孔道,让分子自由进出细胞(取决于细胞内外的浓度),水分子和金属离子大多数时候是这样进出细胞的。有时候,细胞膜上的蛋白质甚至可以将物质从低浓度一侧运输到高浓度一侧,当然毫无疑问,这需要消耗能量。较大的分子就是依靠这种机制运输的。
在最极端的例子里,细胞甚至可以通过大尺度的扭曲折叠来运输分子。比如,我们血液里的白细胞可以将整个细菌都包裹起来“吞噬”进细胞内,我们大脑里的神经细胞可以反其道而行之,将细胞内的小液泡释放到细胞外,进行神经信号的传递。说起来,这些信息可能是过去半个多世纪里,科学界对高特和格兰戴尔磷脂双分子层模型最重要的修改了。细胞膜不再是平静无趣的致密球壳,而是一个镶嵌着各种各样的蛋白质分子、一刻不停地疏导着细胞内外交通的重要分子机器(图 4-5 为一个简化版的细胞膜流动镶嵌模型)。
但是,如果我们把问题延伸得久远一点,聚焦在最早的地球生命上,那么这个问题就无法简单地解答了。在第一个细胞形成的时候,能量分子和遗传物质是怎么跑到细胞膜“里面”去的?
这个听起来有点傻的问题,真要仔细琢磨一下,会让人心神不定。没错,只要制造出一些磷脂分子,它们会自己聚集成空心球模样的原始细胞。没错,RNA 分子可能是世界最早的统治者,它们可以催化很复杂的生物化学反应,也能完成自我复制。还是没错,ATP 合成酶这种蛋白质能够像一个微型水电站一样,被汹涌而过的离子水流驱动,将化学势能转化为能量货币 ATP,驱动生命活动。更妙的是,不管是磷脂分子,还是 RNA 和蛋白质的组成单元核苷酸和氨基酸,都不是难以制造的分子,米勒和尤里能在烧瓶里制造,就连从天而降的莫奇森陨石上都带着这些不知道在宇宙的哪个角落制造出来的分子。
但是问题也就出现了,无论是 RNA 分子还是蛋白质分子,都是亲水憎油的极性分子,它们根本不可能自由穿过细胞膜进入内部的空腔!除非我们设想一种情形,当一堆磷脂分子正在缓慢聚集成球的时候,恰好在它们中间存在几个 RNA 分子和 ATP 合成酶分子,它们运气爆棚地被包裹在了细胞膜内。要想这样的情形出现,我们需要的已经不仅仅是化学上的可能性了,还需要时间和空间上的惊人巧合。
更何况,今天地球生命用来连通细胞内外的蛋白质分子,在第一个细胞形成的时候应该都是不存在的。说到底,我们似乎又碰到了那个“鸡生蛋还是蛋生鸡”的头疼问题。一方面,制造这些连通内外的蛋白质分子,需要复杂的遗传信息和大量的能量,应该是细胞生命经历长期演化之后的产物;但是另一方面,要是没有这些蛋白质分子将生命物质运送到细胞膜内部,第一个细胞压根儿就没办法形成!难道我们只能寄希望于惊人的时空巧合?而这个概率实在是小到令人难以置信,因此科学家没有放弃努力,一直在寻找一个看起来更合理的解释。
比如,一种解释是这样的,可能在细胞最初形成的时候,“分离之墙”的密闭性还没有那么好,DNA、RNA 和蛋白质还能自由地穿过,安居在细胞内。在细胞生命启程之后,自然选择的力量逐渐改变了细胞膜的化学组成,最终补上了细胞膜上的漏洞。这种解释得到了莫奇森陨石的支持。蒂莫的研究就发现,陨石上的脂类分子和今天细胞膜上的脂类分子略有不同,形成的空心球也具有不同的通透性。
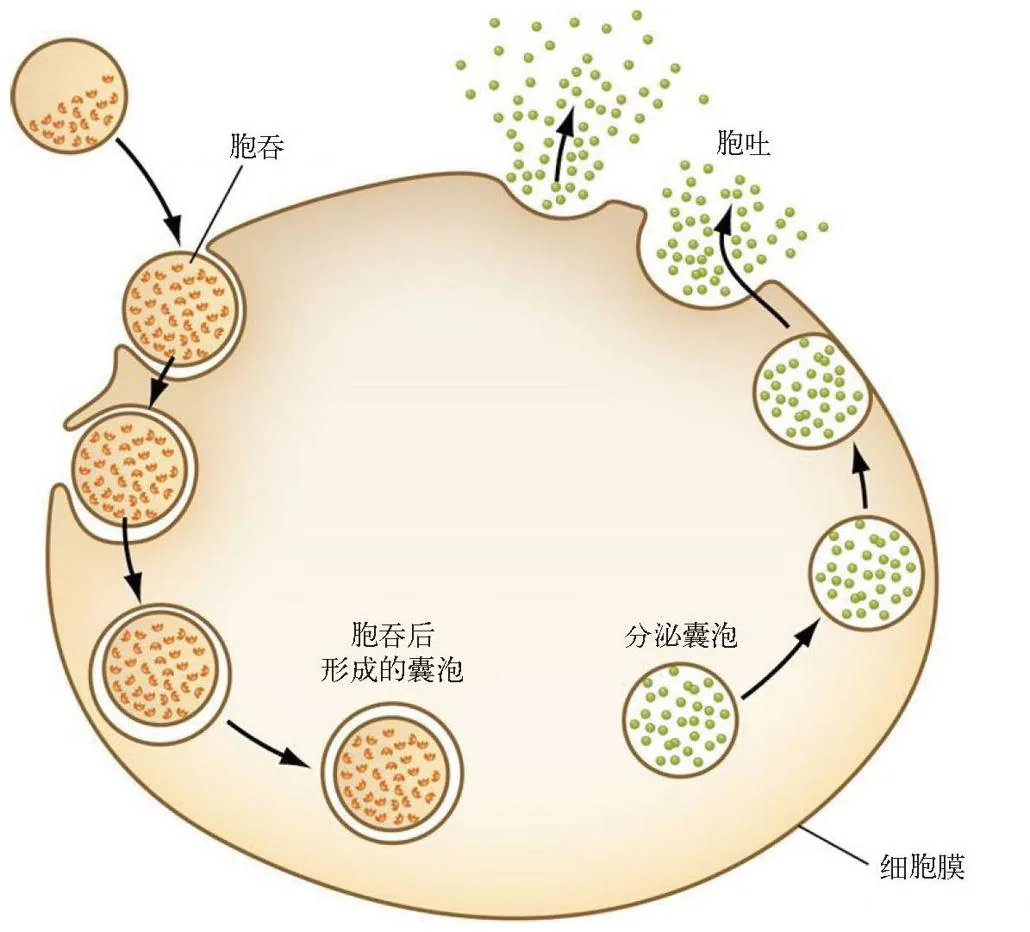
另一种针锋相对的解释是,生物物质不需要“进去”,它们从一开始就定位在细胞空心球的外面。在此后细胞空心球或是通过向内凹陷,或是通过折叠断裂,形成了一个与拓扑结构恰好相反的空心球,这样蛋白质和遗传物质就悄无声息地挪到了细胞内部(见图 4-6)。这种建议尚没有多少演化生物学证据的支持,但是不得不承认,今天的地球细胞确实有折叠扭曲细胞膜的能力,比如人体的白细胞就可以通过类似的过程“吞噬”入侵人体的细菌。
如果我们回想一下上一个“先有鸡还是先有蛋”的问题的解决方案,也许能得到一些有趣的启示。遗传物质 DNA 和活性分子蛋白质难以独立存在,但是两者同时出现的概率又微乎其微,对于这个困扰生物学家很多年的问题,一个最有希望的答案是 RNA——一种能够兼具遗传信息储存和生物活动催化能力的分子。那么有没有可能,“分离之墙”细胞膜的出现和连通细胞内外的物质运输这两个问题也会有一个两全其美的解决方案呢?
可能还真有。说到这里,我们的故事要重新请出前任主角 ATP 合成酶了。
我们在前面的故事里讲过,这个蛋白质对于地球生命有着无可替代的重要意义,它能够利用化学势能制造能量货币 ATP,驱动复杂的生命活动。如果说要给最早的地球生命选一个必须拥有的蛋白质分子,ATP 合成酶是当仁不让的入选者。实际上,通过对今天地球生命各个分支的大规模分析,我们也推测现代生物的最后共同祖先可能是存在于三四十亿年前的单细胞生物。而在那时,原始的 ATP 合成酶就已经存在了。
但是在前面的故事里,我故意留了一个漏洞给大家,不知道有没有人产生了疑惑?就像水电站的运转依赖于大坝两侧的水位差一样,ATP 合成酶的运转依赖于离子的浓度差。但是,在一个离子自由扩散的环境里,这样的浓度差是不可能稳定存在的。也就是说,ATP 合成酶的工作依赖于“分离之墙”。实际上在今天地球生命的内部,ATP 合成酶定位在细胞内部一个叫作线粒体的细胞机器上,线粒体的膜构成了这道“分离之墙”,蓄积起氢离子浓度,这是 ATP 合成酶的工作基础。
而演化生物学的分析显示,在三四十亿年前,ATP 合成酶可能还不是今天的模样。那个时候它长得还不太像精巧的分子发电机,中间大概有个直径两三纳米的孔道,可以让物质自由地流动穿梭。同时,推动它运转的大概也不是氢离子,而是钠离子——考虑到海洋中高浓度的钠离子,这一点并不令人惊奇。也就是说,在原始细胞开始形成的时候,ATP 合成酶一举解决了能量产生和物质运输这两大难题。海水中的高浓度钠离子冲击细胞膜上的 ATP 合成酶制造出 ATP,与此同时,遗传物质也可以借路进入细胞之内。在此之后,伴随着细胞生命的演化,越来越多的复杂蛋白质被生产出来,它们承担起连通细胞内外运输的职责,这时候细胞膜就逐渐变得越来越密闭,ATP 合成酶也逐渐关闭了它当中的暗门。就像 RNA 分子一样,远古的 ATP 合成酶可能同时起到了“蛋”和“鸡”的作用,一身完成了制造能量和运输物质的使命。
也许就是这样,在大约 40 亿年前的某一天,ATP 合成酶最终关闭了它狭窄的暗门,第一个完整的细胞出现,让地球生命的发展终于走上了快车道。
我们可以用达尔文的自然选择理论来理解细胞的意义。在细胞出现之前,自然选择的对象是 RNA 核酶。哪个核酶分子能够更好地利用能量完成自我复制,能够复制得足够快以便逃脱意外事故,能够复制得足够精确以保留自身的优良特性,但是又能允许微小的错误以适应多变的环境,哪个核酶分子就能够活下来,还能“子孙”繁盛,甚至统治整个地球的海洋。但是无论如何,统治地球的不过是一些能够自我复制的生物分子而已,它们可能长度不同,化学组成不同,对水温和酸碱度的适应能力不同。但是在此之外,它们能做的事情非常有限。
而在细胞出现后,细胞自然而然地成了自然选择的对象。在这个背景下,细胞内部的生物化学反应具备了更大的自由度。在细胞出现之前,由一个分子构成的地球生命始终行走在刀锋边缘,一丁点错误都会让它们掉入万劫不复的深渊,实在没有什么闪转腾挪的空间。而在细胞出现之后,由亿万个分子构成的地球生命可以实现近乎无穷的排列组合,在任一种环境下,任一个时空里,都一定有许多组合能够让它活下来。因此我们可以想象,在同样的环境压力下,细胞生命有更多的机会演化出五花八门的生命形态。这也是为什么在今天的地球上,在人类肉眼看不到的地方,生活着仅有一两个微米大小的细菌,也生活着直径上百微米的巨型阿米巴虫;生活着利用太阳能制造 ATP 和生命物质的蓝藻,也生活着靠吞噬动物肠道里的营养物质为生的大肠杆菌;生活着摆动纤毛在水中游动捕食的草履虫,也生活着抱着一大串磁铁能够定位磁场的趋磁细菌。它们仅有的共同点,可能就是利用能量、自我复制和细胞膜这层“分离之墙”。在此基础之上,生命拥有无限的想象空间。
换句话说,有了这道“分离之墙”,才有了我们接下来的美妙故事。让我们继续探索,好好看看这 40 亿年的演化呈现给我们的无穷的想象空间吧。