来源页 · 原书全文 · 第5章
分工:伟大的分道扬镳
保留王立铭原书正文、原段、注释和插图。推荐序分别保留撰写者身份;课程另行录入,不混入原书。
能量在混乱无序的大自然中建立了辉煌有序的生命大厦,自我复制保证了生命能够抵抗漫漫历史长河中的衰退和凋谢,“分离之墙”则让两者合二为一,为地球生命找到了一个足以安身的小窝。有了这三条要素,地球生命数十亿年的壮丽演化看起来水到渠成。
但是,你可能已经注意到了,在这三个约束条件下发展起来的地球生命完全可以停留在非常简单的形态中。就像我们前面的故事里讲的那样,一层薄薄的细胞膜包裹住生命所需的一切元素——从遗传物质 DNA 或者 RNA,到推动各种生命现象运转的蛋白质分子,从水到各种各样的金属离子,等等。实际上,即便在今天的地球上,地球生物圈的主宰都还是最简单的仅有一个细胞的生物——细菌、真菌和古细菌。在单细胞生命出现和繁盛之后,到底是什么力量催生了更为复杂的地球生命呢?
很多读者会自然地想象,高度发达、成功繁衍的生物一定是复杂的;或者反过来说,为了抢占地球生物圈里有限的资源和栖息地,地球生命“不得不”演化出更多的机能,也就是说,变得复杂。我们日常生活中的观察很可能会强化这种误解:蒲公英利用风力把挂着小伞的种子撒向四面八方,向日葵能调整花的方向更好地面对太阳,我们养的金鱼能在水中轻快敏捷地游向抛到水中的鱼食,更不要说看起来霸占了整个生物圈的人类,仅仅利用头脑的力量就上天入地下海,无所不能。这些让人叹为观止的生命奇观都需要复杂精巧的生物结构。中学课本上有句老话,说演化就是“从简单到复杂”,听起来似乎一点也没错。因为只有复杂的生物才能实现复杂的生物功能,才能在地球上成功地生存和繁殖后代嘛。
但是如果从整个生物演化历史、整个地球生物圈的时空尺度来看,“成功”的生物还真的和复杂程度没有什么必然的关系。不管从哪个尺度衡量,地球上最成功的生物仍旧是那些人眼看都看不见的单细胞生物。论数量,全世界有 70 多亿人、200 多亿只鸡(拜热爱肉食的人类所赐)、上千万亿只蚂蚁,而仅仅是单细胞细菌就有 10³⁰ 个。论总重量,地球人类和地球蚂蚁都有差不多一亿吨,细菌则有三五千亿吨重。论物种的丰富程度,70 多亿地球人同属人属智人种,而整个人属生物成功存活到今天的仅仅是智人这一个物种而已,我们连兄弟姐妹都没有。而单细胞生物呢?真菌就有 60 多万种,而细菌的物种总数到今天仍然是一笔糊涂账。有科学家推测,少说得有一万种,而有的科学家则觉得一勺泥土里可能就有这么多细菌物种!
即便抛开这些粗暴的宏观指标不谈,仅仅看地球生命的三个约束条件呢?人体和细菌都是由细胞构成的,两者无非是“分离之墙”细胞膜的物质组成有些区别。比较利用能量的效率,小小的细菌和地球人类难分轩轾。要是比自我复制的速度,前者更是远胜后者。论及出身的话,先不说人类,就算是在最早的多细胞生物出现之前,单细胞生物曾经孤独地统治地球 20 多亿年。而我们熟悉的恐龙、哺乳类和开花植物在地球上的生存期仅有短短几亿年。论生存空间,在地球生物圈所有能想象的地方——哪怕是暗无天日的深海、氧气稀薄的万米高空、终日冒着烟雾的热泉——都能找到单细胞生物的踪影。地球人类总喜欢拿走出地球、走向宇宙来标榜自身的智慧,可是我们也知道,早就有数不清的细菌附着在人类航天器的外壳上飞向了宇宙,并且它们还确确实实可以在无氧、温度变化剧烈、充斥着宇宙射线照射的环境里生存!
吃还是被吃?
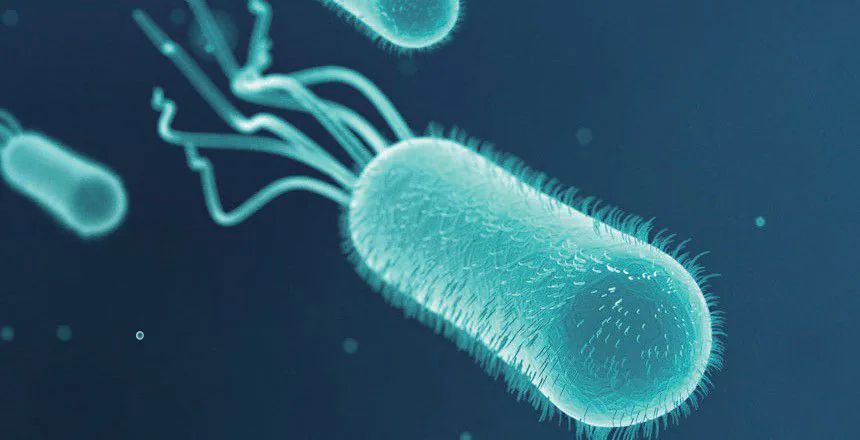
和很多人的想象不同,渺小简单的单细胞生物(大多数时候仅有几微米到几十微米大小)却可以实现相当复杂的功能。许多单细胞生物可以利用长长的鞭毛驱动自身运动(见图 5-1),有些单细胞生物(例如蓝藻和草履虫)甚至有了非常原始的光感觉系统。
因此,问题其实可以反过来问:既然单细胞生命如此古老,如此顽强,如此富有生命力,那么更复杂的生物为什么会产生?是如何产生的?为什么在产生之后也会繁盛至今?这是一种历史的必然,还是漫长演化史中一片偶然的涟漪?
毫无疑问,复杂生命出现的第一步,是从单个细胞组成的生命,到许多个细胞粘连在一起形成的多细胞生命。一个本质性的约束在于,单细胞生命不可能长到无限大。一般而言,单细胞生物的直径在几微米到几十微米之间,只有在某些极其罕见的环境中才会存在体积非常庞大(相对而言)的单细胞生物,例如在深海一万多米下的马里亚纳海沟发现的古怪生物,单个细胞甚至可以长到大小 10 厘米的尺度!
为什么单个细胞的体积看起来有一种无形的约束呢?一个关键原因是物质交换的压力。在“分离之墙”的故事里我们已经说明,隔绝生命和环境的细胞膜同时也为生命与环境之间进行物质交换提供了通道:营养物质需要进入细胞,生命活动产生的废物需要离开。而细胞如果变得太大,那么相对它的内容物来说,细胞膜就太小了。比如,如果一个细胞的直径扩大一倍,那么体积就会变为之前的八倍,但是细胞膜的表面积却仅仅扩大为原来的四倍。也就是说,在这个大号细胞里,细胞膜进行物质交换的压力就大了一倍。
而另一个关键原因则是物质生产的压力。我们知道,生命现象需要蛋白质分子的驱动,而蛋白质合成需要遗传物质 DNA 作为模板。在大号的单细胞生命中,对于蛋白质分子的需求会以直径的三次方的速度增加,但是 DNA 模板却永远都只有那么一套。也就是说,大号细胞会对 DNA → RNA →蛋白质的工作效率提出离谱的要求。
这两个原因加起来,应该能够解释为什么绝大多数单细胞生物都生活在人眼不及的微观尺度中了。也是同样的原因,如果生命想要实现更复杂的功能(我们暂且不讨论为什么生命需要这些功能),唯一的办法就是增加身体内细胞的数量,让更多的细胞,而不是个头更大的细胞,去完成这些复杂的功能。
这个目标具体怎么实现呢?
我们必须强调,至少在纯粹的技术层面上,单细胞生命演变成多细胞生命并没有什么出奇复杂的地方,实现起来也挺简单的。在“分离之墙”的故事里,我们讲过,在细胞生命出现后,细胞就成了生命复制繁衍的基本单元。单细胞生物长大变长,完整地复制一套携带所有遗传信息的 DNA 密码本。之后,单细胞生物从中断裂开来,一分为二,各执一份 DNA 密码本,变成两个大多数时候都一模一样的后代细胞。两个后代细胞彻底分离,各自独立生活,再一次开启遗传物质复制 - 细胞分裂 - 后代细胞分离的循环。从某种意义上说,地球上现在活着的所有单细胞生物,都可以回溯到一个从亿万年前就开始分裂不休的英雄“母亲”。
在这个遗传物质复制 - 细胞分裂 - 后代细胞分离的无限循环支持下,单细胞生物想要变成多细胞生物就很简单了。理论上说,只需要保留复制 - 分裂的步骤,让分离这一步无法进行就可以了。这样,单细胞“母亲”仍然可以源源不断地复制出大量的后代来,但是这些后代总是牢牢地结合在一起无法分离,一个最原始的多细胞生物不就制造出来了吗?
事实上,地球上的多细胞生物很可能真是这么来的。当然,我们无法乘坐时光机器,亲自去查看多细胞生物的祖先是何时何地从单细胞生物衍生而来的。但是通过分析现存多细胞生物的基因组信息,我们能够推断,单细胞生物到多细胞生物的变化在整个演化史上至少反复和独立出现了 46 次,这也间接地说明了让后代细胞从彼此分离变成相互结合并没有难以逾越的门槛。
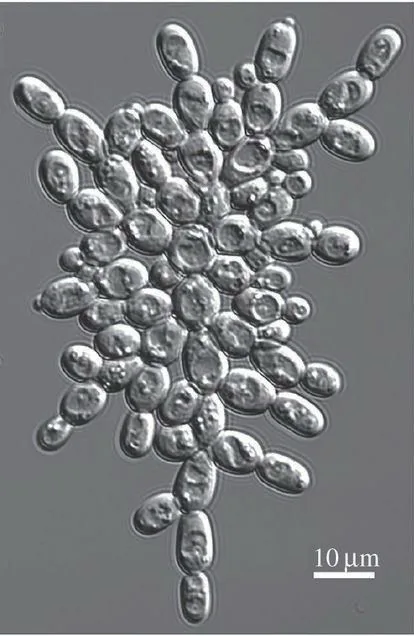
今天我们已经能在实验室里重现这个现象。科学家发现,仅仅需要改变 DNA 密码本的一个字母(也就是 DNA 链条上的一个核苷酸的身份),就能够让一种单细胞生物变成雪花状的多细胞生物。说得更技术一点,单细胞生命的两个后代在刚刚分裂完成的时候总是粘连在一起的。演化的力量只需要在两个后代细胞之间的连接处动动手脚,让两个后代细胞“粘连”得更紧一点,不那么容易分开,多细胞生命的出现就水到渠成了(见图 5-2)。
一旦跨过单细胞与多细胞生物之间的门槛,带来的直接好处是显而易见的(当然,同样明显的还有它的坏处,这里就不多展开了)。一个非常直白的好处和“吃”与“被吃”有关。
是的,在地球生物圈里只有看似无聊的单细胞生物的时候,“吃”和“被吃”这两件事就已经出现了。就拿初中生物课上就已经提及的单细胞生物——草履虫来说吧,它是一种(更准确地说是一类)两三百微米长、长得像一只草鞋鞋底的单细胞生物。这种长相怪异的单细胞生物靠细胞膜上密密麻麻的短毛划水游动,靠捕猎其他体形更小的单细胞生物过活。它们的食谱里包括细菌、绿藻和酵母。
一个自然而然的想法就是,如果复制 - 分裂后的细胞不再分开,而是始终粘连在一起,那么这样的生命体形会更大,相对而言也就不那么容易被吃掉了。而反过来似乎也说得通:在这种情形下,如果猎手还希望填饱肚子,那么它们自己也需要用同样的方法变大,因为只有变大以后才可以去吃体形更大的食物。
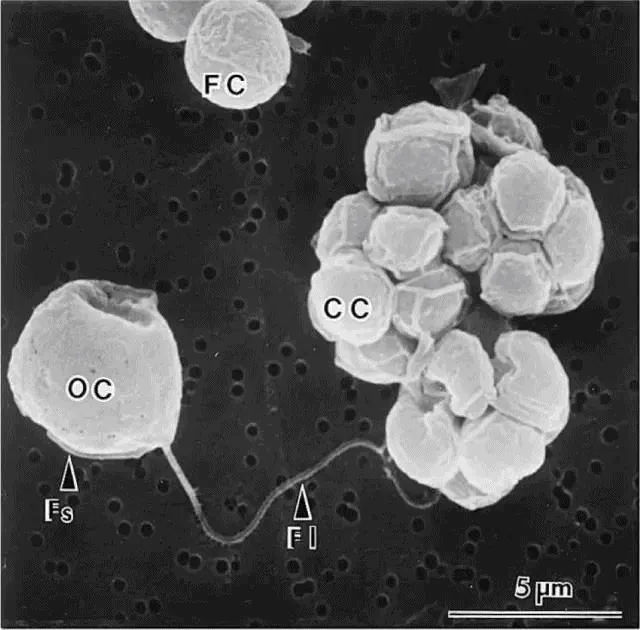
有趣的是,这正反两方面的例子都能找得到。拿前者来说,一个被反复研究的物种是小球藻(chlorella vulgaris)。这是一种古老而典型的单细胞生物,在水中随波逐流,自由生活,利用太阳光作为能量来源,通过细胞分裂的方式完成繁殖。但是如果在水中加入一种体形稍大、专门吃小球藻的鞭毛虫(ochromonas vallescia),那么仅仅需要一个月,繁殖 10~20 代的时间,小球藻就能迅速演化出多细胞形态。在这些多细胞小球藻体内,八个细胞紧紧依靠在一起,外面包裹了一层厚厚的细胞壁(见图 5-3)。很明显,这种八细胞小球藻的尺寸大大超过了它们一贯畏惧的天敌鞭毛虫,可以逃过被吃的命运。
而反过来,作为捕食者的鞭毛虫居然也可以向多细胞形态演化。这个故事的主角是一类叫作领鞭毛虫(choanoflagellate,见图 5-4)的单细胞生物。这类看起来不起眼的水生生物,在演化史上却是整个动物界的近亲,和人类有着共同的祖先。作为介于单细胞和多细胞之间的物种,某些领鞭毛虫(例如 salpingoeca rosetta)能够自由游动,利用自己那根长长的可摆动的鞭毛游泳和觅食;而在某些情况下又可以自发形成多细胞聚集的结构。但是长期以来,人们并不知道这两种状态切换的原因是什么。
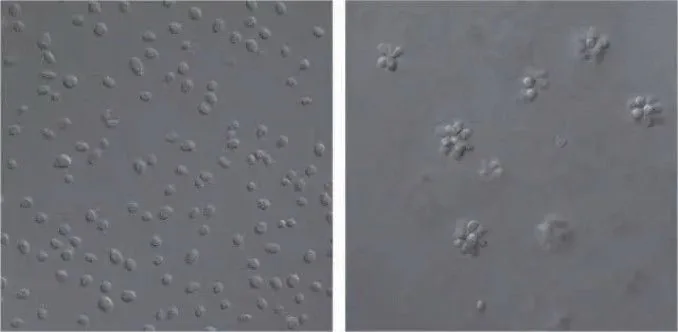
直到 2005 年,醉心于研究领鞭毛虫的女科学家妮可 • 金(Nikole King)计划对领鞭毛虫进行全基因组测序,从而搞清楚这种微生物的细胞内究竟有多少基因,这些基因又是怎样决定这种小生命的变身秘密的。为了准备对领鞭毛虫样品进行基因组测序,她的学生在养殖领鞭毛虫的水缸里加了一堆抗生素,希望杀死混迹其中的各种细菌,准备“干净”的样品。结果,令人震惊的现象发生了,所有的多细胞态领鞭毛虫就像听到了解散口令,全部散伙变成了单细胞态的鞭毛虫。这个意外的发现提示了一种有趣的可能性:生活环境中的某种细菌才是让领鞭毛虫切换到多细胞状态的原因。因此,当抗生素杀死了这种未知的细菌时,多细胞领鞭毛虫就消失了。
金所领导的实验室经过进一步研究,还找到了引发这种变化的分子开关——一种细菌产生的磺酸脂。更妙的是,这种细菌恰恰就是领鞭毛虫的天然食物。因此,我们顺理成章地总结出以下的逻辑:领鞭毛虫的多细胞态很可能就是为了捕获细菌美食而存在的,这种大个的“吞噬者”形态会对小小的细菌形成泰山压顶的巨大优势。而如果食物不存在,这种笨拙的形态也就失去了生存优势,会被更加自由和灵活的单细胞状态所取代。
在这两个例子里,我们能够直觉感受到“吃”和“被吃”在多细胞生物这种称得上是最简单的“复杂生命”形成中的深远意义。实际上,确实有很多科学家猜测,早期的地球生物圈是和平的、稳定的,当然也是无趣的。那时候,原始海洋里遍布各种微小的单细胞生物,它们要么慵懒地漂浮在海洋表面,利用太阳光的能量驱动小小的生命,要么深藏在海底的热泉喷口。
多细胞生物的出现又一次加速了地球生命的发展。
最早的多细胞生物可能像我们的故事所言,仅仅具备尺寸上的优势,但是“吃”和“被吃”之间的白热化博弈就此拉开了序幕。捕食者变大了,那么食物可能只有游得更快,躲得更隐蔽,对环境变化更敏感,才活得下去;反过来,捕食者就需要更狡猾,更敏捷,更强有力。多细胞生物的出现,就像一根魔法棒搅动了原始海洋。在吃别人和被别人吃的激烈博弈中,生命才如火山迸发一样出现在这个地球上。
当然,也许单细胞到多细胞生物的转折仅仅是出于“吃货”的考量,但是在这一转折真正发生以后,接下来发生的事情就只能用令人叹为观止来形容了。生命的多细胞形态赋予了地球生命无穷无尽的可能性。
这一切的基础就是:分工。
分工:希望和代价
单细胞生物注定是多面手。至少,制造能量和自我复制就是两个必不可少的功能。因此,有些单细胞生物(例如蓝藻)能吸收和利用太阳能;有些单细胞生物(例如硫细菌)利用各式各样的化学能;还有些单细胞生物(例如草履虫和领鞭毛虫)干脆变成了微型捕食者,能够寻找和吞噬比它个头小的其他单细胞生物。而根据日常经验,多面手往往意味着哪方面都不是顶尖的高手,就像足球场上的万金油肯定成不了罗纳尔多,成不了齐达内,也做不成舒梅切尔。
多细胞生物的出现为精细分工和专精一业提供了无限的可能。如果多细胞生物不是简单地堆叠起一堆一模一样的单细胞,仅仅靠尺寸取胜,而是每个细胞都有点与众不同的功能会怎样?理论上说,一个三细胞生物就可以将自我复制、运动和获取能量的功能完全分开。如果它的一个细胞长出一条长长的鞭毛用来游泳,一个细胞长出柔软的嘴巴可以吞噬细菌,一个细胞专门负责不停地复制分裂以产生后代,这样它生存和繁衍的效率得提高多少?
当然,这仅仅是一种理论上的猜测而已。生物演化不是搭乐高玩具,暂且不说这种怪里怪气的三细胞生物会不会在自然史上出现,即便是出现了也不一定会有什么生存优势。但是多细胞分工的意义却是实实在在的。
一个很有说服力的案例是运动和生殖的平衡。对于一个单细胞生物来说,运动和生殖还真的就是鱼和熊掌不可兼得的两种能力,至少不能同时具备。这里的玄机在于,不管是生殖还是运动,本质上都需要将生物体储存的能量转换为力。在细胞分裂时,遗传物质的移动和分配需要力,鞭毛的摆动当然也需要力。而在两种看起来风马牛不相及的生命活动背后,产生具体作用力的基本生物学机器其实是通用的。
具体来说,一种叫作微管的蛋白质可以在细胞内组装长长的坚固的细丝。在细胞分裂的时候,长长的微管能够把两份一模一样的 DNA 分别牵引到细胞的两端,保证分裂出的后代都有一份珍贵的遗传物质,而负责游泳的长长的鞭毛也是由微管形成的。
这个一物二用的思路是非常自然的,在生物演化的历史上出现过许多次旧物新用的情景。毕竟,为已经存在的蛋白质安排一个新功能,要比演化出一个全新的蛋白质容易得多。但是一物二用也产生了鱼和熊掌不可兼得的矛盾:单细胞生物在游泳的时候就没办法分裂,在分裂的时候就不能觅食。可想而知,如果运动和生殖机能能够彻底分工,一部分细胞专门负责运动,另一部分专门负责生殖,这样一来,两种极端重要的生物学功能就不需要互相干扰了——当然,这一点只有在多细胞生物中才可以实现。
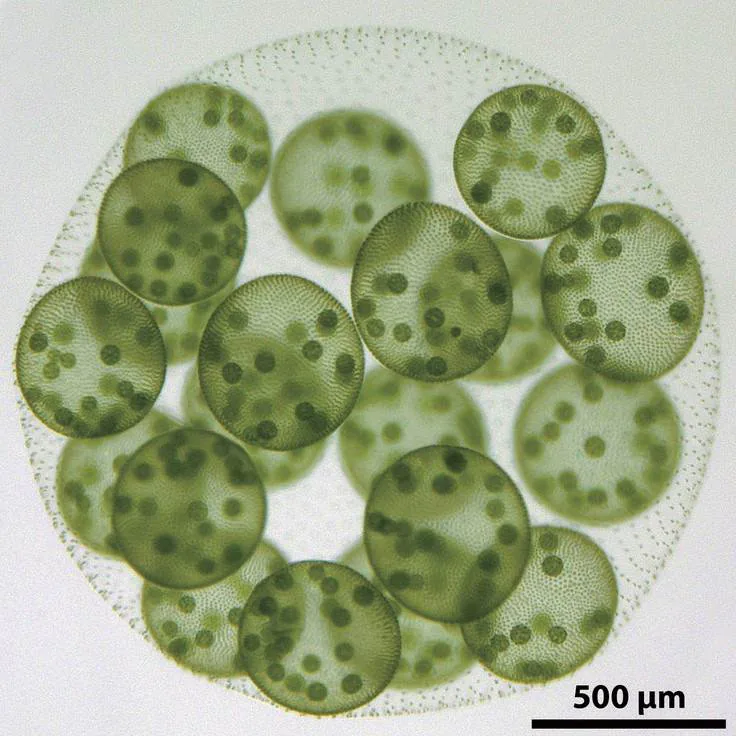
一种叫作团藻的多细胞生物非常生动地说明了运动和生殖分工的优势。这种非常原始的生物完美地诠释了“食色,性也”这句老话。每个多细胞团藻中有且仅有两种细胞形态——数万个个头较小、长着鞭毛的体细胞和十几个个头很大、没有鞭毛、专门负责复制和分裂的生殖细胞(见图 5-5)。体细胞组成了一个大大的球体,数万根鞭毛的规律摆动让团藻可以在水中轻捷地运动,而被保护在内部的生殖细胞就可以毫不停歇地专心复制、分裂进行繁殖。
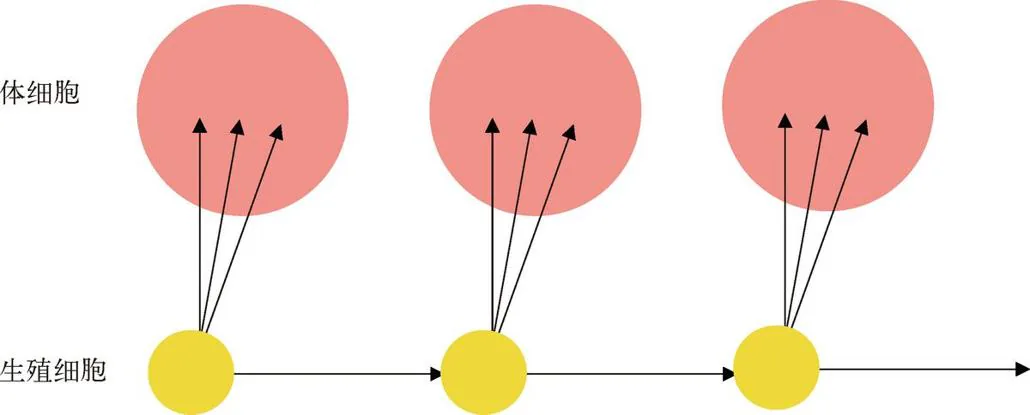
当然,团藻的细胞分工是非常粗浅的,但是运动和生殖的分工却可能代表着地球生物演化历程中最基本也是最重要的一次分工。在团藻的身后,多细胞生物的组成单元被永久性地区分成了专门负责产生后代和专门负责维持生存的两种细胞(见图 5-6)。生殖细胞(也就是专门负责产生后代的细胞)从某种程度上依然保持着单细胞生物的本质。它们有机会永生不死,可以持久地分裂复制,按照自己的样子制造出一个又一个后代,它们的后代又依葫芦画瓢,继续自我复制和分裂。而除了生殖细胞之外,所有负责维持生存的细胞(也就是体细胞)都注定转瞬即逝。它们在诞生后只有至多一个生物世代的寿命。当一个多细胞生命死去的时候,它所携带的所有体细胞都会随之烟消云散。
这场开始于十几亿年前的分道扬镳,产生了两个意义深长的结果——当然,这取决于你站在什么立场。
如果站在单个细胞的立场上,细胞分化可以看成是一种“阶级压迫”。我们说过,分工的代价是一部分细胞永生不死,而另一部分细胞永久性地丧失了繁殖的权利,只能在生命个体的短暂生存期内勤勉工作。这当然是一种巨大的不平等——如果体细胞也会有平等概念的话。从某种意义上说,分工对于生命本身的意义,是通过大量细胞自我“牺牲”实现的,是它们为永生不死的生殖细胞创造了生存空间。这种巨大的不平等当然蕴含着危机:万一突然出现一个不愿意牺牲的细胞怎么办?
举个看得见摸得着的例子吧。大家小时候可能都观察过蚂蚁。可能也都知道,一个蚂蚁群体里仅有一只雌性(也就是蚁后)可以繁殖后代,其他的雌性都是为了保障蚁后的生存而活着的:工蚁负责觅食和照顾蚁后的后代,兵蚁负责抵抗外敌入侵,等等。就像体细胞一样,工蚁和兵蚁也失去了繁殖的权利。当然,群体遗传学可以帮助我们解释这种奇怪的利他行为:工蚁和兵蚁的遗传物质和蚁后几乎一样,因此帮助蚁后繁殖就等于传递自身的遗传信息。但是我们从逻辑上可以做如下推测:如果有一只工蚁哪天突然意识到自己为蚁后服务是“不平等”的,是一种残忍的“牺牲”,自己完全可以寻找合适的交配伴侣直接产生后代,那么先不管这只工蚁能不能如愿以偿,至少它所在的那个蚂蚁社会很可能就此分崩离析。
最早的多细胞生物也面临同样的麻烦。当然,不管是细胞还是蚂蚁,它们都没有真正的能力去主动做出“选择”,但是遗传突变和自然选择可以起到同样的作用。还是以团藻为例,如果在某一个团藻体内,某个长着鞭毛的体细胞产生了一个遗传突变,让它重新具备了分裂繁殖和分离的能力,那么这个不安分的体细胞就会立刻在几万个勤勤恳恳游泳的体细胞中脱颖而出——只有它才有机会留下自己的直系后代。如果它的单细胞后代能够顺利存活,那么这个偶然出现的新的单细胞生命就可以反过来和那些多细胞状态的亲戚竞争,甚至打败它们。这样一来,多细胞生命就会重新退回到单细胞状态。
这可能是多细胞生物在演化史上独立出现了那么多次,但是其中的大多数都没有后代活到今天的原因。换句话说,作为伟大分工的代价,多细胞生物要面对一个永恒的难题:如何预防、压制和惩罚那些不愿意接受既定分工、特别希望重新拥有繁殖能力的细胞?
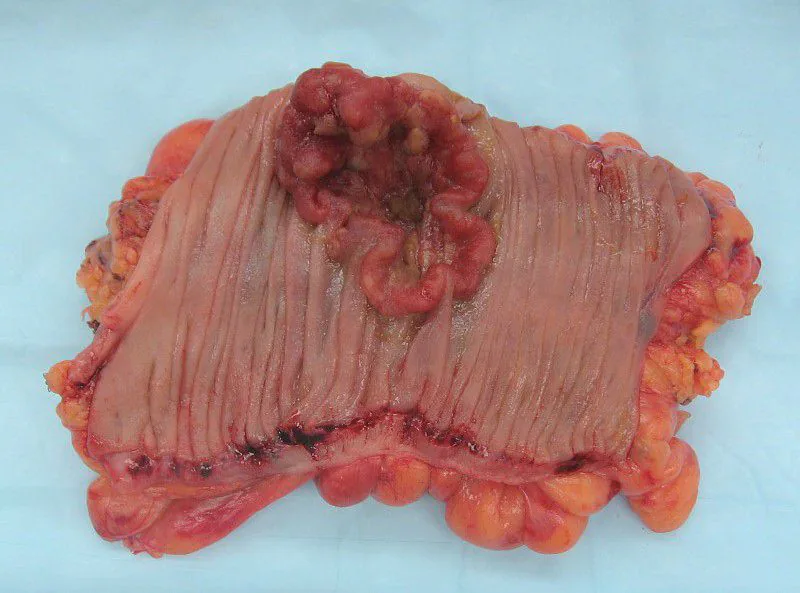
最能说明这个棘手问题的可能就是癌症了。癌症的源头,正是某些本该循规蹈矩地完成它的使命、帮助人体健康存活的体细胞,由于遗传突变,突然重新获得了疯狂自我复制进行繁殖的能力(见图 5-7)。当然,人体已经演化出了极强的纠正和惩罚这些不听话细胞的能力。大部分偶然的遗传突变能够被细胞自身修复,大部分已经开始不听话的癌变细胞也能被免疫系统找到并杀死。但是时不时仍会有一些细胞不惜以破坏整个生命体的健康乃至生命为代价,满足自身复制进行繁殖的本能。想想看吧,人类和所有动物的祖先早在十几亿年前就已经完成了体细胞和生殖细胞那次伟大的分道扬镳,从那时起,这种分工就被持续不断地完善和强化。但仍然有细胞会利用一切机会,抵抗和逃脱这亿万年演化形成的枷锁,顽固地表现出自我繁殖的本能。
可以让我们稍微松一口气的是,发生在体细胞中的癌变,其影响力也是有限的,至多危害这个个体自身的健康和生命,不会真的造成整个多细胞生命谱系的崩塌。我们刚刚描述的不听话的团藻细胞,不太可能会在人体中出现。但是还真的有些癌细胞能够利用让人叹为观止的方法得到永生。
例如在犬科动物之间传播的一种肿瘤:犬类生殖器传染性肿瘤(canine transmissible venereal tumor)。人们早在 130 年前就发现了这种肿瘤。因为它的传染性,人们一直以为它就是一种病毒引起的肿瘤:狗狗之间交配导致了这种未知病毒的传播,而病毒感染能够让狗狗得癌症。但是人们最终发现,其实压根儿就没有什么未知病毒,癌症也不是由外源的病毒引起的。肿瘤传播的媒介就是肿瘤自己!这种肿瘤生长在狗的生殖器附近。在狗狗交配时,极少量的肿瘤细胞剥离脱落,在亲密接触中直接进入另一只狗的生殖器,进而附着、分裂、繁殖和传播。
这种肿瘤显然是狗自身的体细胞遗传突变形成的。据科学家推测,可能在几百到几千年前,一只狼或者东亚狗生殖器附近的某一个体细胞压抑不住繁殖的本能,一次偶然的遗传突变让它重新开始分裂繁殖。这个侥幸逃脱了免疫系统惩罚的“不听话”的细胞,从此获得了永生,而且随着犬科动物之间的交配让子孙后代遍布世界各个大陆,这显然是一种极其成功的生存策略。
从这个小小的例子中,我们大约能够又一次确信,包括人类在内的所有多细胞生物,与单个细胞顽强的生存和繁殖“意志”之间的战斗,将会永远继续下去。而这可能是所有复杂生命必须承担的代价。
从细胞分工到君临地球
当然,复杂生命“愿意”承担这样的高昂代价不是没有原因的。这就要说到第二种看待细胞分化的角度了。站在复杂生命自身的立场上,细胞分化的好处大到无法舍弃。历经数十亿年的演化,多细胞生物之所以仍然能够屹立不倒,没有被前面所说的沉重代价压垮,甚至还出现了地球人类这样开始尝试统治地球生物圈的智慧生命,肯定有简单的单细胞生命难以企及之处。
一言以蔽之,分工为地球生命更复杂的功能分化提供了基础。
体细胞永久性地失去了生殖能力,因此也就不需要担心为分裂增殖需要保持什么样的形态、合成什么样的蛋白质,或者维持多长的寿命。这给了它们足够的空间演化出花样繁多的形态和功能。我们的身体里有两百多种巧夺天工的细胞类型,它们之间的差异大到看起来都不像是同一种东西,但正是它们之间的精妙配合维持着我们的生存和繁衍。
还是举几个例子吧。大家可能都知道,弯弯曲曲的小肠是人体吸收营养物质最重要的器官。当营养物质经过小肠的时候,氨基酸、脂肪酸、葡萄糖等分子可以穿过小肠内壁的细胞进入身体的循环系统。因此,小肠内壁的细胞有两个独特的性质。首先,它们彼此间紧密连接,相邻的两个小肠上皮细胞(见图 5-8)之间由大量的蛋白质“铆钉”紧紧绑定在一起,构成了小肠内容物和身体循环系统之间的屏障,阻止小肠内部的食物残渣和细菌进入人体。其次,小肠上皮细胞向内的一侧还长出了密密麻麻的突起,以增加和营养物质的接触面积,提高吸收营养物质的能力。
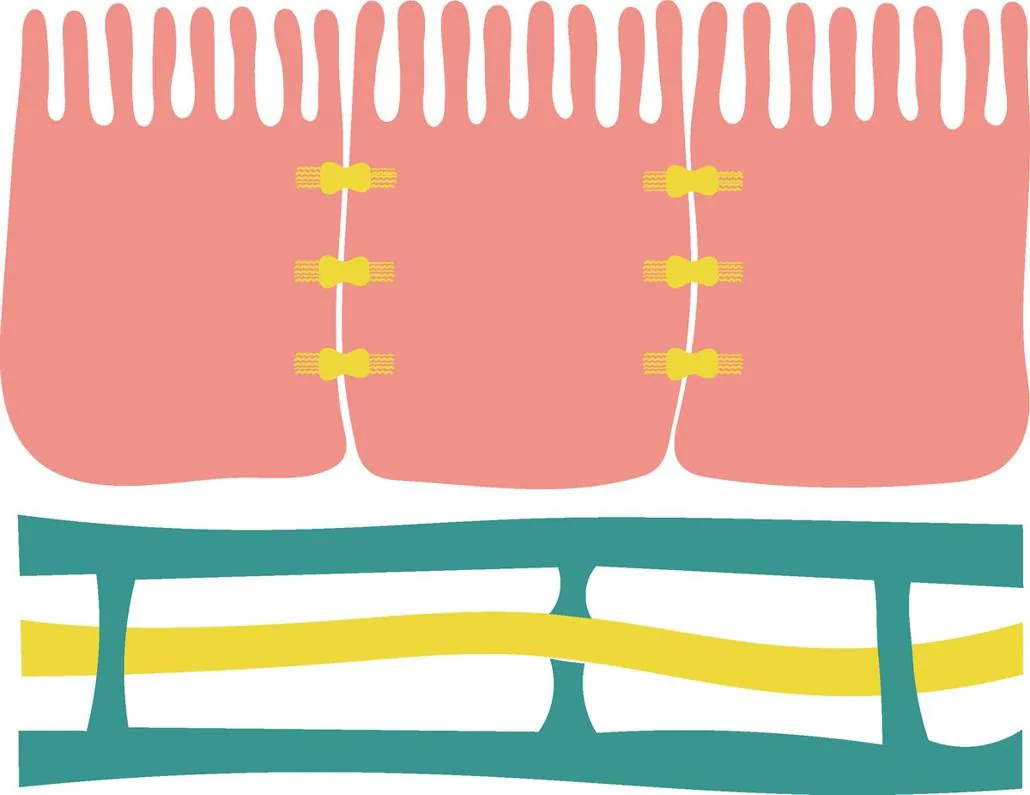
根据这两个特性我们可以推测,小肠上皮细胞的分裂增殖不是一件简单的事情。如果上皮细胞随意分裂,小肠的屏障和吸收功能必然会受到影响。如果细胞沿着水平方向分裂增殖,那么在细胞分裂结束前后、紧密连接尚未形成时,就给了食物残渣和细菌入侵人体的可乘之机。而如果细胞沿着垂直方向分裂,那么分裂产生的子细胞就会远离小肠内部,根本没有接触和吸收营养物质的能力。
实际上的确如此。绝大多数小肠上皮细胞根本就没有繁殖能力,它们从出生的那刻起就不知疲倦地帮助人体吸收营养物质,直到四五天后细胞老化或破损,彻底消失。而小肠上皮细胞的补充仅仅发生在小肠上皮的凹陷处被称为“肠隐窝”(crypt)的结构中。在这里,上皮干细胞能够活跃地分裂增殖出新生的上皮细胞,而这些新生细胞则立刻开始沿着小肠内壁向外迁移,以替换衰老死亡的上皮细胞。也就是说,即便是在小肠上皮这种看起来结构和功能都相对单一的系统里,也存在着不同细胞类型之间功能的取舍。为了更好地起到屏障和吸收营养的作用,绝大多数小肠上皮细胞也需要放弃自身分裂增殖的能力。
说到细胞功能分化,最极端的例子可能是红细胞。在包括人类在内的哺乳动物体内,红细胞干脆就没有细胞核和任何遗传物质,也就是说,从根本上放弃了繁殖的能力。实际上,新生的红细胞是有细胞核的,但是在它们离开骨髓进入血液前后,红细胞会挤出细胞核,变成大家熟悉的中心薄、周围厚的圆饼形状。抛弃细胞核的好处是显而易见的:这样一来,红细胞就留出了更多的空间装载血红蛋白分子,从而可以一次运输更多的氧气分子。与此同时,没有了细胞核的红细胞更加柔软,遇到狭窄的毛细血管时可以轻松地变形通过。对于每一个红细胞个体来说,它们付出的代价是彻底断了传宗接代的念想,只能在大约四个月的短暂寿命里机械地搬运氧气分子。对于红细胞所服务的哺乳动物个体而言,则借此机会获得了更充足的氧气供应和更高效的末梢循环系统,同时还顺便减少了红细胞癌变的风险。这些特性在漫长的演化史上,很可能会帮助哺乳动物跑得更快,活得更久,让它们的子孙后代遍布这个星球。
而伟大分工的辉煌顶点,可能就是人类的大脑和人类的智慧。
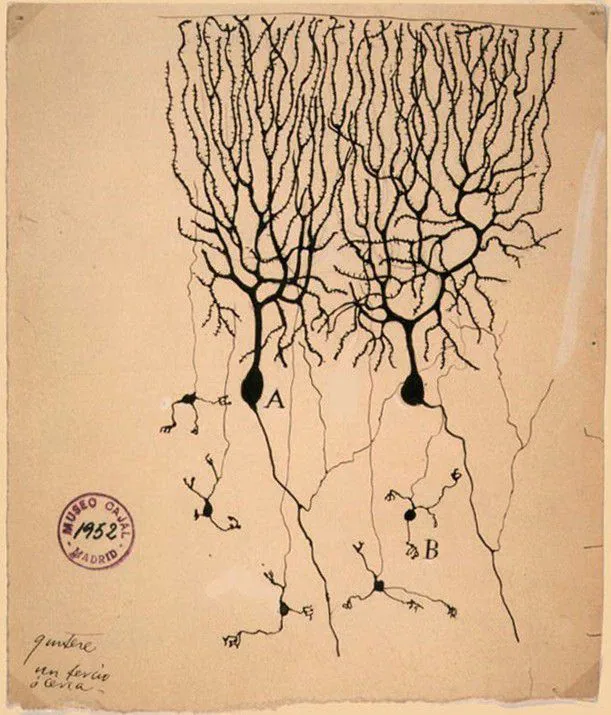
在地球人类的大脑里密布着高度特化的神经细胞。早在一百多年前,西班牙科学家圣地亚哥 • 拉蒙 - 卡哈尔(Santiago Ramón y Cajal)就利用光学显微镜观察到,人脑中遍布着形态各异的神经细胞(见图 5-9),它们往往一边长着密密麻麻、状如树丛的突起,另一边伸展出一根长长的触须。卡哈尔敏锐地猜想,这些奇形怪状的细胞很可能发挥着信息传递的功能:那些树丛状的突起(他命名为“树突”)很可能用来接收来自其他神经细胞的信号,而那一根长长的触须(他命名为“轴突”)则很可能用来向更多的神经细胞发送信号。
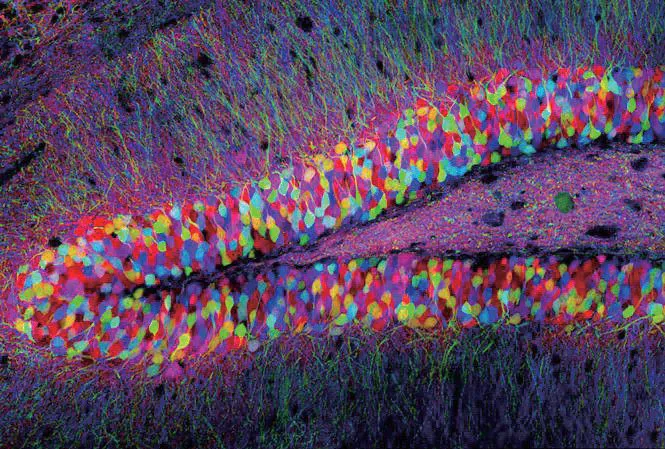
神经信号传递的本质在 20 世纪中叶逐步得到揭示:神经细胞的细胞膜上分布着数种奇特的蛋白质分子。这些蛋白质分子像闸门一样开合,改变了细胞内外带电离子的流动,从而产生了微弱的电信号。这种电信号可以沿着神经细胞的突起方向高速运动,实现信息的远距离输送。在人类大脑中,千亿数量级的神经细胞紧密缠绕,通过千万亿数量级的海量连接形成了密如蛛网的系统(见图 5-10)。我们可以想象,这些细胞电信号的强弱和频率,以及彼此之间的连接方式和相互影响,构成了一个巨大的计算网络,从中涌现出人类的感觉、情感、记忆和思想。
在接下来的章节里,我们会花更多的时间讲述人类智慧的生物学。在这里首先想要提醒大家注意的是,在绝大多数时间里,成熟的神经细胞都丧失了继续分裂增殖的能力。只有这样,神经细胞独特的形态、神经细胞的信号特征、神经细胞之间形成的计算网络才能够得到维持。也只有这样,我们才能牢牢记住我们是谁、住在哪里、前一天遇到过什么危险,我们才能积累知识,形成稳定的人格,组成复杂的团体和社会。
也就是说,亿万年前那次伟大的分道扬镳,不仅仅奠定了复杂生命的基础,而且开启了通向人类智慧的大门!