来源页 · 原书全文 · 第8章
社交:从乌合之众到伟大社会
保留王立铭原书正文、原段、注释和插图。推荐序分别保留撰写者身份;课程另行录入,不混入原书。
故事讲到现在,有没有觉得似乎差了点什么?
从不安分的能量分子到原始细胞,从复杂生命的开始到逐渐掌握了观察和学习这个世界的本领,地球生命始终是“一个人在奋斗”。
不要误会我的意思。我当然不是说在亿万年的光阴里地球上只有孤零零的一个生命,而是说在我们截至目前的故事里,每一个地球生命所能依靠的只有自己。它穿行在危机四伏的黑暗森林,每个匆匆掠去的黑影或者突然响起的怪声,都可能随时夺去它的生命;每一顿美餐都需要自己努力寻觅,还得提防随时会扑上来的同类争抢……而且我猜想,它肯定没有什么倾诉的欲望,因为不管多么婉转的歌喉都注定无人倾听,最大的可能反倒是招来天敌环伺。
这样的生物当然同样可以生存和繁茂。实际上单以数量来论,这颗星球上最成功的细菌在一生中绝大多数时间里过的就是这样的生活:从生到死,这世界的一切对一枚细菌而言只意味着有没有危险、有多少食物。
小细菌的大社会
之所以说“绝大多数时间”,是因为即便是细菌,在某些特定的场合也会尝试着呼朋引伴,做一点超越自我的事情。
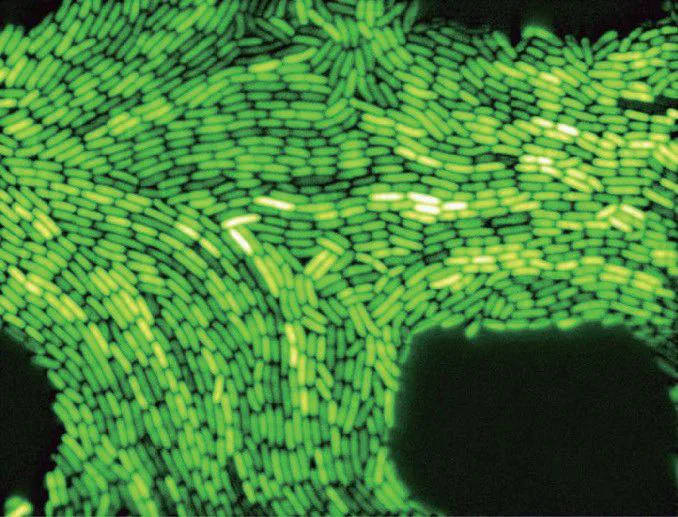
比如,在 20 世纪 60 年代,大家就发现在一种海洋生物夏威夷短尾乌贼的身体里住着一种会发光的细菌——费氏弧菌(aliivibrio fischeri,见图 8-1)。这种细菌奇妙的地方在于,单个生活的时候是不发光的,只有当一大堆同样的细菌聚集在乌贼体内的时候,它们才会不约而同地发光。这种没长眼睛的细菌好像有一种神秘的能力,能察觉到周围到底有多少个小伙伴。如果小伙伴多了,它们就会相约一起点亮荧光棒,自娱自乐地来一场演唱会!
可想而知,在这种现象的背后一定存在一套同类识别系统,能够让每个费氏弧菌都感知到周围存在多少同类;也一定存在一套响应系统,能够让每个费氏弧菌在发现同伴之后点燃荧光。美国普林斯顿大学的科学家邦妮 • 巴斯勒(Bonnie Bassler)在过去数十年的研究中揭示了这两套系统的工作原理(见图 8-2),并且发现这两套系统其实是基于同一个东西——细菌很节约。
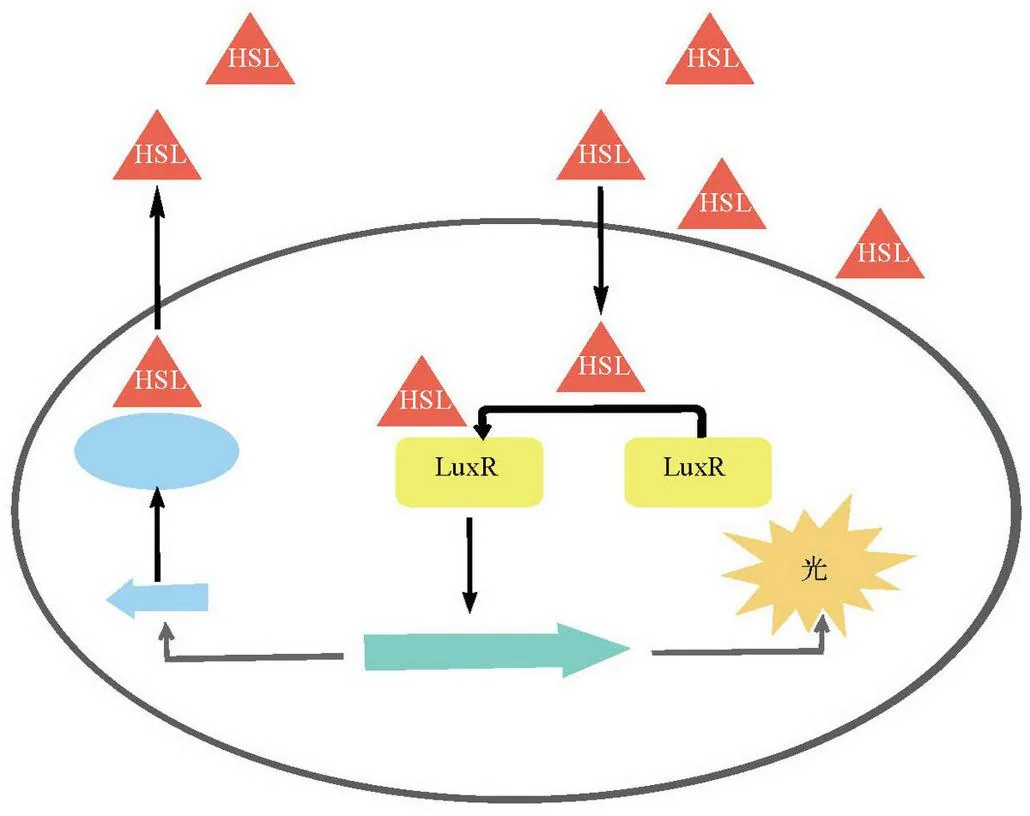
简单来说,每个细菌都会持续生产并向外界释放出一种信号分子来标识自己的存在。简单起见,我们就叫它“存在感”信号好了。这种“存在感”信号也会重新进入细菌体内,促进它自己的生产。当细菌单独生活的时候,周围“存在感”信号分子的浓度非常之低,因此它的合成和释放就会维持在低水平的平衡状态。
但是当周围突然出现一大群同类细菌的时候,情况就会发生剧烈的变化。环境中的“存在感”会急剧升高,它反过来也会继续促进每个细菌继续生产释放更多的“存在感”信号,因此在环境中会出现一个“存在感”的爆炸式增长。而这个“存在感”信号分子身兼两职,除了让细菌能够标识自己的存在之外,还能让细菌生产更多的荧光素。因此不难想象,在“存在感”爆棚的环境里,每一个细菌都会被点亮,乌贼的身体会变得闪闪发光。
这种看起来纯属自娱自乐的行为对细菌而言无疑是沉重的负担。至少我们可以想象,它们不大的身体里就需要准备一整套感知同伴、点亮荧光的生物化学机器和对应的遗传物质。但是这也反过来说明,这种行为一定不仅仅是自嗨,它对于细菌的生活肯定非常有用处。
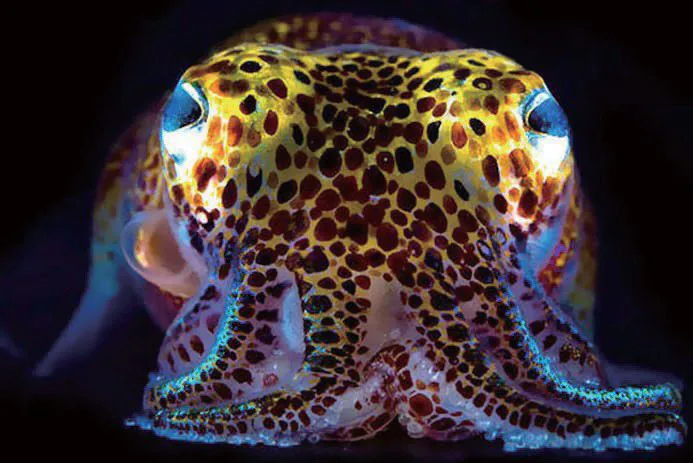
确实如此。更有意思的是,这个“用处”还是通过一套特别精巧的系统实现的。一群细菌聚集在乌贼体内一起点灯,而在细菌灯光的伪装下,细菌寄生的乌贼(见图 8-3)就能够在月夜下完全隐藏自己的身影,像海底的隐形轰炸机一样悄悄接近猎物,捕获一顿丰盛的晚餐。而乌贼活得好,就能给发光细菌提供更多的栖身之所——这才是细菌感知同伴和相约点灯的真正“用处”。
我们可以想象,这个“用处”要想落到实处,必须存在一大群细菌互相配合才行。单个细胞就算是能点亮荧光,那点光也远不足以帮助乌贼和自己;而一群细菌如果自顾自地决定什么时候发光,来个此起彼伏的灯光秀也仍然不行。正是这个条件非常苛刻的用处,让这种细菌能够在夏威夷温暖的海洋里,用这种奇妙的方式活下来,而且活得闪闪发光——真正字面意义上的闪闪发光。
小小的细菌告诉我们,做个独行侠当然也可以繁衍生息,但是有些更复杂、更好玩的事情,我们必须在一起才能做到。在细菌小小的身体里,可能已经隐藏着社会、社会行为和社交天性的生物学秘密。
团结就是力量
实际上,许多动物的社会行为也同样可以理解为帮助它们做到了一些单个生物做不到的事情。荒野上的狼群可以集体捕猎,杀死比自己个头大得多的猎物。反过来食草动物(比如斑马和羚羊)也会集体行动,这样能吓跑一部分捕食者,在天敌来犯的时候有更大的机会活下来。更复杂一点的,还有共用巢穴、共同抚养后代等社会行为。毫无疑问,这些行为能够帮助动物活得更安全、更有效率。团结就是力量嘛。
说到团结就是力量,最有力的证明要算那些所谓“真社会性”的动物了,比如大家耳熟能详的蜜蜂和蚂蚁。
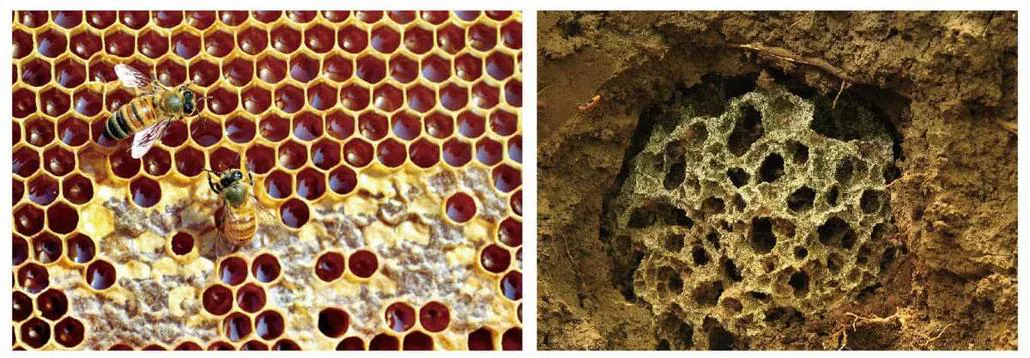
凡是见过蜂巢和蚁巢的人,都会惊叹于那些小小的虫子是如何修建这样气势恢宏的建筑的(见图 8-4)。人类几乎无法设想,这些昆虫是怎样在没有设计师也没有统一指挥的情况下,建造出严整的六角形蜂窝或者四通八达的地下蚁穴的。特别是考虑到蜂巢的原材料要靠每只工蜂从身体中一点点分泌出来,而蚁穴的每块泥土都要靠工蚁一点点搬运走,它们的建筑要远比最美轮美奂的人类建筑更艰难、更伟大。
而比建筑更严整的是它们的社会结构。拿蜜蜂为例,在一窝上万只蜜蜂的蜂群里,一般只有一只蜂后专司生育后代,几百只雄蜂专门负责和蜂后交配提供精子,而上万只工蜂则负责建造蜂窝、清理尸体和排泄物、采集花粉、喂养幼虫、抗击入侵者等任务。换句话说,一整窝蜜蜂可以看作一个动物个体,蜂后和雄蜂就是它的生殖细胞,工蜂则是它的体细胞。(还记得我们讲过的分工的故事吗?)从蜂窝里单独抓任何一只蜜蜂出来,它的生存能力和表现出的行为都是极其有限的。但是上万只蜜蜂在一起,通过复杂的社会组织,竟然可以完成看起来只有人类这样的智慧生物才能完成的伟大工程!蜜蜂最好地诠释了社会行为的震撼力量。
那这种严整的社会结构在生物学上是如何实现的呢?
通过对比蜂后和工蜂(见图 8-5),我们可以得到不少提示。在遗传物质的层面,两者是完全一样的。实际上蜂后根本就是被随机挑中的:在成千上万的蜜蜂幼虫中,工蜂会挑一只作为下一代蜂后培养,而且没有证据它们经过了精挑细选。富含糖类的蜂蜜是绝大多数蜜蜂幼虫的食物,而这一只未来蜂后则以蜂王浆为食——这是一种工蜂分泌的、富含蛋白质的乳白色液体。
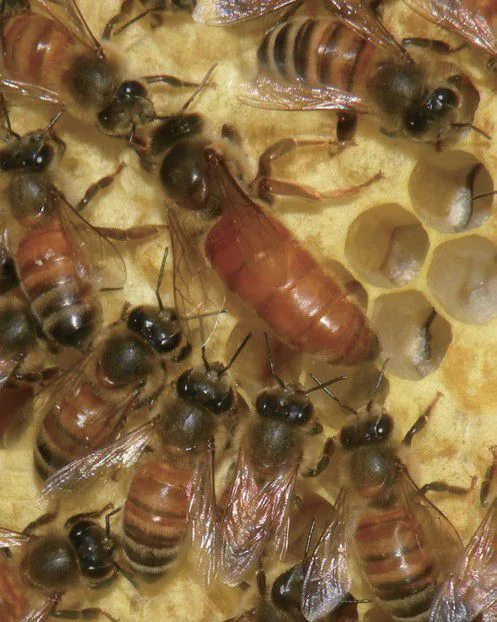
食物的不同让“本是同根生”的未来蜂后和其他幼虫走上了完全不同的发育路线。未来蜂后会在蜂王浆的滋养下快速成熟。它体形硕大,身体里发育出了大量的卵巢。交配后可以以每天 2000 枚卵的速度生育后代。而其他幼虫则长大变成了下一代工蜂,它们身体较小,失去了生育能力,但无师自通地学会了从飞行到采蜜、从保卫到抚幼的一系列行为。我们可以猜测,蜂王浆中可能含有能够促进蜂后发育的物质。而反过来,也有证据显示,蜂蜜中含有能够抑制蜜蜂卵巢发育的物质——比如香豆酸(p-coumaric acid)。双管齐下,未来蜂后和工蜂的命运就此确定。
而即便是在工蜂内部,也有非常精巧的分工。人们早就发现,刚发育成熟的工蜂会负责清理蜂巢和给幼虫喂食这些“内勤”工作。5~7 周之后,它们才逐渐掌握飞行的本领,开始执行采蜜和保卫这些“外勤”任务。这种行为转变显然非常重要,因为它为工蜂分配了高效率的工作模式。美国伊利诺伊大学香槟分校的基恩 • 罗宾逊(Gene Robinson)发现了这种行为转变背后的某些生物学逻辑。执行内勤和外勤任务的工蜂在基因表达上有一些显著的差异,例如,后者胰岛素信号的活动水平更高,一个名为“觅食”(foraging)的基因也表达得更活跃。当然,这些信号意味着什么,它们是如何影响行为的,至今仍是一个谜团。但毫无疑问,一个有趣的可能就是,随着工蜂年龄的增大,它们大脑里的生物化学过程影响和决定了它们的任务分工,最终构造起复杂的蜜蜂社会。
性别的出现和复杂社交
从细菌和蜜蜂的故事里,我们可以看到,生物因为个体之间的配合协作,能做到原本孤独的个体做不到的事情,这些事情更宏观,更复杂,可能也更好玩。但是社会和社会行为的意义还不只如此。特别是在性别出现之后,动物之间的社会行为又一次骤然丰富了起来。
原因很简单。细菌的社交也许仅仅限于在特定的场合标识自己和识别同类,但对于有性别差异的动物来说,社交已经成为生存的基本需求了。哪怕它们没有蚂蚁和蜜蜂那样修建宫殿的雄心壮志,它们或多或少都得参与三种社交活动:竞争配偶、求偶交配、抚育后代。对于这些动物来说,“一个人在战斗”的场景从理论上就已经不可能了。
为了解释这一点,我们先说说看,为什么在地球生物的演化历史上会出现性别。
必须说明,性别的出现并不是地球生命演化的必然。事实上直到今天,无性别的生物还是地球生物圈的主流——全部细菌都没有性别的区分,同时还有上千种动物、植物、真菌也没有性别。它们只需要靠自己就能活得很好,只要靠自己就可以繁殖后代。就拿一枚细菌来说,它们只需要在吃饭之余定期地一分为二、二分为四、四分为八……就可以千秋万代地永远存在和繁殖下去。这也就是为什么我们可以说,现在地球上生活着的所有细菌,都是同一个细菌祖先的后代。那个伟大的祖先其实从来未曾死去,而是一直活在每一代后代的身体里。理论上说,今天每一个细菌后代的身体里,都还保留着最早祖先(微乎其微)的遗传物质。
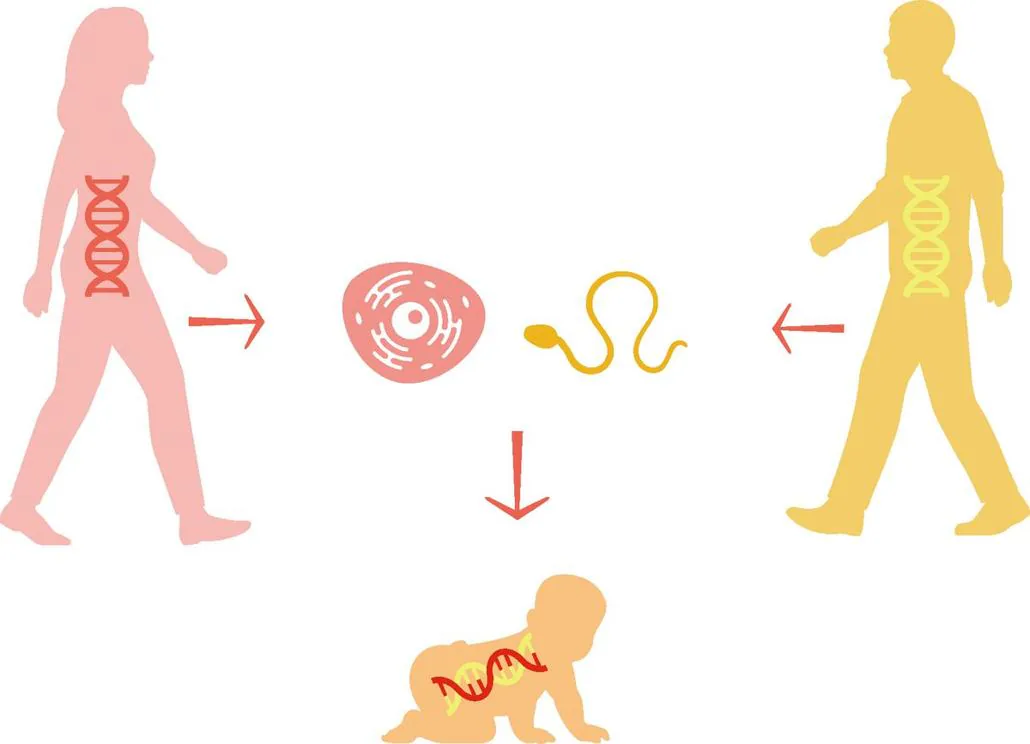
而反过来看性别的出现,我们最先看到的,可能反倒是它的天然缺陷。一个非常明显的麻烦就是,自从性别出现那一天开始,生物想要繁殖后代就再也做不到独善其身了。它必须在有限的寿命里找到和自己性别不同的另一半,并与之结合,才有机会繁殖后代,把自己的遗传物质传递下去(见图 8-6)。要是没有完成这个任务,之前亿万年绵延到它这里的遗传信息接力赛将就此中断。它的祖先即使曾经十分强大兴盛,也将迅速在历史上失去踪迹。而更要命的是,即便它辛辛苦苦找到了另一半完成了交配和繁殖的使命,它的后代身上也仅仅有它 50% 的遗传物质。相比简洁高效的无性繁殖,性别这件事的费效比其实低得惊人。更不要说在这个过程中,它还需要和同性其他个体竞争上岗,需要努力博得异性的欢心,最后可能还需要小心翼翼地照顾后代。
然而我们的日常经验大概会得出完全相反的结论:我们能观察到和想到的几乎所有生物,都存在性别差异。有一个简单的检验方法是看看我们的餐桌,从鸡鸭鱼猪牛羊这些肉食,到青菜白菜苹果香蕉这些蔬果,再到米饭面条红薯土豆这些主食,无一例外都是有性别的生物。(当然必须指出,在农业生产中,有些时候我们会用无性生殖的方法来培育它们,比如土豆和红薯。)
套用本章开头的逻辑,我们可以想象,既然在巨大的代价之下,性别仍然可以如此顽强和广泛地存在,而且越是复杂的生物就越是普遍存在性别,说明性别一定有更加巨大的演化意义,足以抵消它的缺陷。
必须承认,性别具体有什么样的好处,这些好处是不是真的在一定程度上足以抵消性别的代价,实际上直到今天仍然没有被一致接受的解释。但是目前至少已经有几个相当可靠的猜测。比如,相比总是一个人战斗,总是持续地一分为二、二分为四的无性生殖,异性相吸的有性生殖要更容易创造多样化的后代,因此更能适应多变的地球环境。
我们假设一个场景。假设有一种小生命快乐地生活在原始地球的温暖海洋里,本来每天吃吃喝喝,到点分裂出两个后代,活得挺滋润。但是突然有一天,海洋的温度和酸碱度同时发生了剧烈的变化,水温上升 10 摄氏度,pH 值下降了 5。可想而知,新环境对所有活着的生物都是一种严峻的考验,它们当中的绝大多数估计撑不过这一次挑战。
现在,我们来假设一下什么生物能活下来。我们知道,遗传物质复制存在概率非常低的错误,这也是生物多样性和自然选择的基础。因此我们可以做这样的猜测,如果海洋中本来就有一些出现变异的小生命,它们同时能够抵抗高温和酸性环境——或者说,它们身体内携带了“抗高温基因”和“抗酸性基因”——这些幸运儿就能活下去,并且很快成为新环境的主宰。
但是问题来了,两种变异基因同时出现在一个个体上的概率,将是一个非常低的(幸运)数字。假设出现一个基因变异的概率是一亿分之一(这其实已经是过分高估的数字了),那两个变异基因同时在一个个体上出现的概率,将只有一亿亿分之一!这个数字在现实中几乎就等于说这种可能性压根儿就不存在了。换句话说,这种快乐的小生命,不管它在海洋中已经繁殖了多少个个体,繁衍了多少代,将在这次环境剧变中彻底灭绝。
在这种场合,本来显得累赘烦琐的有性生殖就有用武之地了。对于存在性别的生物来说,只需要父母双方分别携带一个变异基因——比如父亲是“耐高温”,而母亲是“抗酸性”(见图 8-7)——在它们交配繁衍的后代中,就会有一定比例是同时携带两个变异基因的,这些后代就可以幸运地存活下来。在这个情景下,我们对变异基因出现的概率要求就低多了,只需要两种变异基因分别出现在不同个体就可以。如上所述,这种可能性是一亿分之一,有性生殖将这种小生命存活的概率提高了一亿倍!
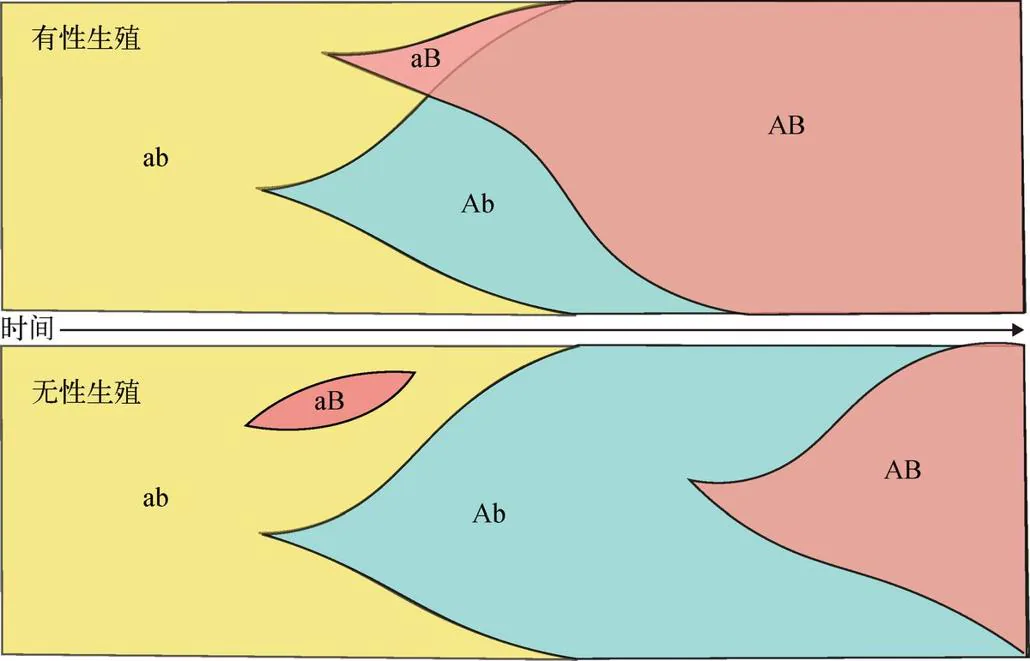
这个假想案例告诉我们,以求偶、竞争和抚育后代为代价,性别的出现和有性生殖将极大地增加生物个体之间交流遗传信息的频率,为后代创造更大的遗传多样性。这种可能性在环境巨变的时候将成为物种存续的救命稻草。我们也可以想象,或许正是这种可能性,让几乎所有复杂地球生物都选择了保留性别这个看似累赘的负担。
也正因为此,地球生物的社交生活一下子变得丰富多彩起来。首要的原因当然是有性生殖创造了更大的生物多样性,让更多的生物性状(从外形、生理、习性到社交行为)得以出现。而与此同时,也因为性别的出现,让很多社交行为(比如异性间的求偶、同性间的竞争、对后代的抚育,等等)成了生存和繁殖的必需。
动物社会和社会行为从此开始流传世界、蓬勃兴盛起来。
求偶社交:对面的女孩看过来
我们就用一种特别的社交行为来说明问题吧:寻找配偶。
性别的分化意味着想要繁殖后代,让自己的遗传物质继续流传,每个动物个体都要首先找到和自己性别不同的另一半,击败各路潜在的竞争对手,展开热情的追求,最终赢得另一半的欢心。我们人类寻找伴侣其实也是这个画风。
这种行为貌似无师自通,但是仔细想来其实非常复杂。
首先,怎么找另一半?换句话说,一个动物个体怎么知道自己是什么性别,又怎么确认其他个体的性别,然后判断出谁的性别和自己不一样、是合适的求偶对象呢?
对实验室动物的研究能够给我们一些有趣的提示。对于小鼠和果蝇这两种截然不同的实验室动物来说,雄性识别雌性的原理其实非常相近:“闻香识女人”。公老鼠能够闻到母老鼠尿液里的一些化学物质,它们就靠这个信息来锁定交配伴侣,然后“性”致勃勃地展开追求。雄果蝇也类似,它们可以通过味觉系统“尝”出雌果蝇身体上携带的某些化学物质。实际上,如果把这些雌性特有的物质添加到其他雄性身上,雄鼠和雄果蝇就会变身“同性恋”,同样“性”致勃勃地对雄性展开攻势了。
因此,我们首先可以推测出一个并不令人吃惊的结论:动物依靠各式各样的感觉刺激来分辨性别,就像人类可以从长相、服饰乃至头发的长短来判断性别一样。
而接下来的任务就要复杂一些了:识别出了“可人”的另一半之后,动物如何展开追求和竞争?
在人类社会,追求和竞争活动一般由男人来完成。不管是买玫瑰、送巧克力,还是唱情歌、秀关怀,又或者是一掷千金来个物质攻势,本质上男人做的事情都是一样的:向女人证明自己是优越的伴侣,并且自己比其他竞争者更优越。实际上在大多数地球生物中,都是雄性在主导求偶和竞争的环节,而雌性拥有最后的选择权。
你可能会觉得,人类社会的求偶竞争已经离题万里。毕竟不管是巧克力、情歌还是宝马车,本质上和交配、繁殖、传递遗传物质这件事的成功率毫无关系啊。
但是你将会看到,为了成功地找到配偶,许多雄性动物做得远比男人离谱。
来自澳大利亚和新几内亚的园丁鸟提供了一个绝佳的案例。公园丁鸟往往会花上好几个月甚至好几年的时间精心建造一个自己专属的求偶场地。它们会清理出一块干净的地面,用心铺上厚厚的苔藓,然后用树枝搭建一个像宝塔一样的亭子。很多时候,它们还会到处搜集色彩鲜艳的装饰品(花朵、果实、昆虫的外壳、甚至人类生产的工业品)来装饰这个场地(见图 8-8)。完成之后,它们会在求偶场地上鸣叫、起舞,直到有雌性受邀前来。在整个过程中,雌鸟会反复考察好多个不同的求偶场所,判断谁家的装饰最美观、谁家的亭子最坚固,最终选定一个真命天子。
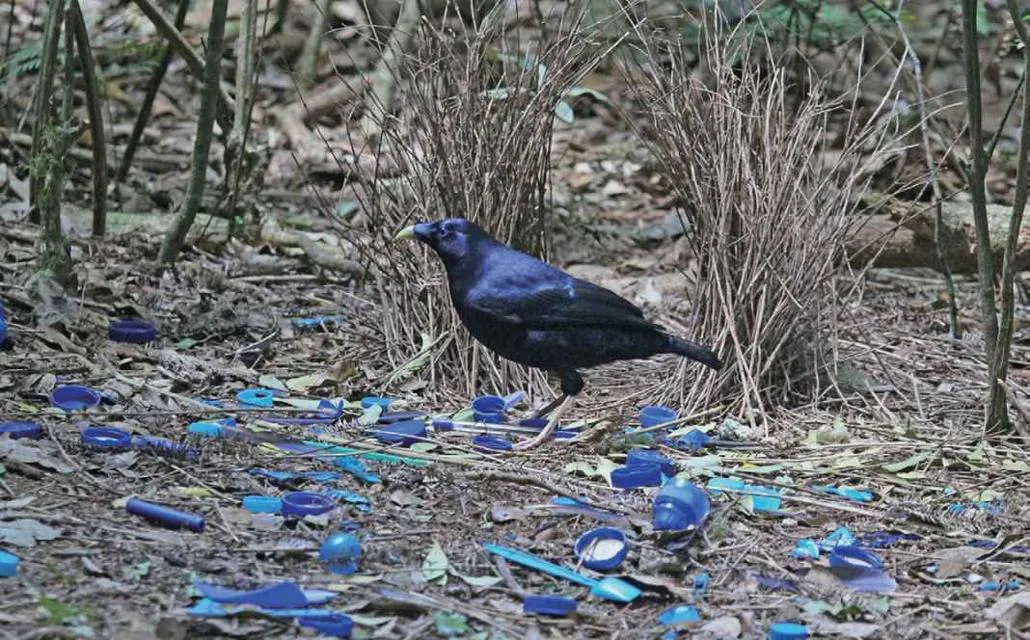
请注意,整个过程里最诡异的地方在于,这个精心准备的求偶场所是地地道道的面子工程。它既不能住,也不能用来产卵和孵蛋,甚至大多数时候都不能用来储藏食物。它唯一的目的就是吸引雌鸟前来交配。更要命的是,这只雌鸟之后还不得不自己重新搭建一个鸟巢用来抚育后代,而那个时候已经完成交配任务的雄鸟早就跑得没影了!相比公园丁鸟,至少同样喜欢“面子工程”的男人准备的巧克力还能吃,开来的宝马车还能坐啊。
除了勾引雌性,雄性动物之间也会经常展开直接的竞争,胜利者自然而然拥有更多的交配机会。和很多人想象的不同,雄性之间的竞争往往并不是真刀真枪地干仗,反而是虚声恫吓的场景更多一些。比如,人类的近亲黑猩猩往往形成小集团过集体生活,里面领头的那一只公猩猩享有绝对的交配权。如果集团里有另一只不安分的公猩猩想要取而代之,那么两者之间就会爆发场面激烈的冲突,面对面大声吼叫(见图 8-9),剧烈地捶打前胸,互相踢腿。但是一般而言,这些动作主要是为了让对方知难而退,而不是真的把对方打趴下。在几个回合的交锋之后,弱势一方往往就会认输撤出战场,主动放弃交配权的争夺。
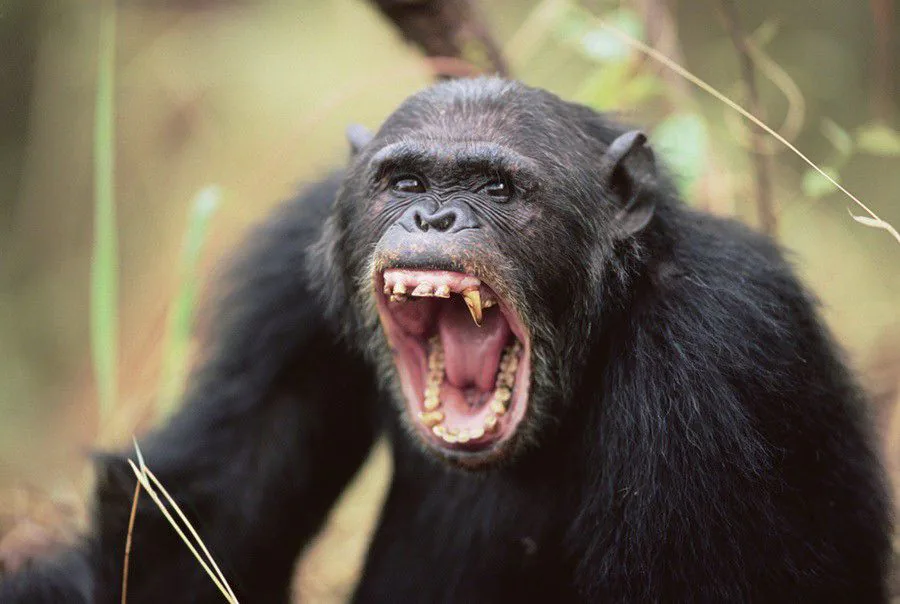
也就是说,不管是园丁鸟的炫耀,还是黑猩猩的捶胸顿足,本质上都是没有什么实际用途的行为。但是它们再生动不过地展示了,在性别出现以后,地球生物为了成功繁殖后代、继续传递自己的遗传物质,可以发展出怎样复杂和多姿多彩的社会行为来。
语言:伟大社会的基础
说到这里,社会和社会行为的基础我们已经讨论得差不多了。生命个体聚集在一起相互配合和响应,能够完成个体无法完成的复杂任务;而性别的出现进一步丰富了社会行为的层次和形态,甚至在此基础上,还能催生出看起来毫无实际用途的花架子社交行为来。
但是要构造一个真正的伟大社会,这还远远不够。
在上述所有的社交方式中,生物个体之间能传递的信息是非常有限的。发光细菌的例子自不必说,它们能传达和接受的信息只有一个,就是“存在感”信号的强弱。即便是到园丁鸟的案例里,尽管公园丁鸟能做出让人叹为观止的建造行为(实际上在西方殖民者第一次看到园丁鸟的求偶亭的时候,他们无论如何都不相信这是鸟的杰作),但是公鸟和母鸟之间的交流仍然是非常有限的,仅限于选择和被选择。
蜜蜂的交流当然要更上一层楼。比如早在 20 世纪 40 年代,奥地利科学家卡尔 • 冯 • 弗利希(Karl von Frisch)就发现,采蜜归来的工蜂可以通过一种特别的摇臀舞蹈(见图 8-10)来展示食物的位置。蜜蜂会一边快速摆动尾巴一边在蜂巢上沿直线爬行,周而复始重复多次。直线爬行的角度标识了食物(相对于太阳)的方向,而直线爬行和摇臀舞蹈的时间则标识了食物的距离。弗利希的研究一开始被同行嗤之以鼻,认为是异端邪说或者是牵强附会,但是在过去的大半个世纪里,人们逐渐意识到,互相交流食物和危险信息的能力在动物社交生活里普遍存在,而使用的媒介除了蜜蜂这样的视觉信息,还有嗅觉信息、味觉信息、听觉信息、触觉信息,等等。
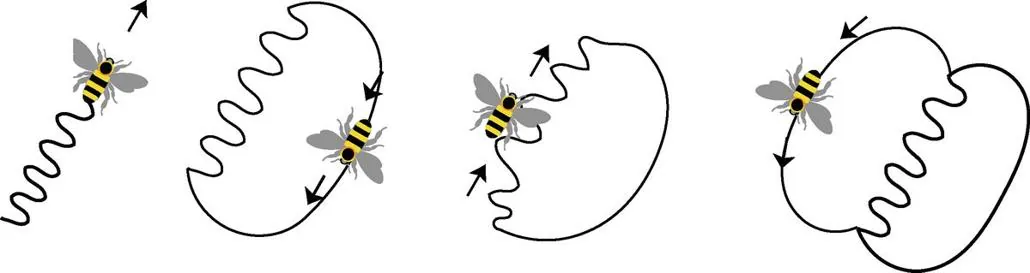
实际上回头看,蜜蜂的案例倒是可以自然而然地证明信息交流在复杂社会中的重要性。像蜜蜂和蚂蚁这样高度社会化的昆虫,彼此间要是没有高效的交流方式反倒奇怪了。因为没有交流也就没有信息共享,没有交流也就谈不上复杂的社会分工,那么一群生物个体就只能是各自为战的“乌合之众”,根本发挥不了“团结就是力量”的神奇作用。
说到这里,我们最后的假设已经呼之欲出了:人类高度复杂的社会构成同样需要复杂的信息交流工具,它的基础就是独一无二的人类语言能力。
我们先来看现象,人类社会的信息共享和社会分工远远超越了任何其他地球生物。借助书籍、信件、媒体和互联网,人类社会的信息共享真正做到了跨越时间和空间的限制。今天的我们可以通过阅读两千年前的《史记》了解鸿门宴上项庄舞剑的前因后果,也可以上网查询万里之外的美国总统特朗普又发了什么推特。如果横向比较一下的话,这一段文字所蕴含的信息量,要远远超过一窝蜜蜂传达一辈子的信息。而就在我们做这些事的时候,整个人类世界在一天的时间里所产生的数据,几乎相当于古代社会数千年的总和!
而在信息交流共享的大背景下,社会分工同样越来越精细和个性化。在动物社会中,社会分工往往依靠生理差异,比如个头大的雄猩猩会更有机会成为头领,带领整个小团体生活;吃蜂王浆长大的蜜蜂会变成蜂后,承担起繁殖后代的使命。可想而知,这种类型的分工必然是粗糙的,显而易见的生理差别(比如体形、年龄)非常有限,一个群体内的多样化是没办法被发掘出来的。而人类社会则大大不同,越来越严密的教育、筛选和考察系统,使每个个体都在非常丰富的维度上被定义和分类——价值观、智力高低、体能优劣、友善度、内向外向、逻辑思维、语言能力,甚至是颜值和衣着品位,然后进入不同的职业和人生发展通道。当然,我们往往会诟病这套系统里的各种问题,一考定终身啊,或器物化活生生的人啊,等等。但是在我看来,问题恰恰在于我们的教育、筛选和考察系统还不够精细,还不足以真的让每个个体都展示出自己精彩和独特的内涵。
无论如何,人类独一无二的语言促成了如此复杂的信息共享和社会分工。在语言学家艾弗拉姆 • 诺姆 • 乔姆斯基(Avram Noam Chomsky)看来,人类语言的独特性质就像搭积木:在某种基本的框架约束下(也就是所谓语法),我们可以随心所欲地将各种词汇组装起来,来表达我们的思想——哪怕这个思想亘古以来首次出现,哪怕这个思想所指代的事物普天之下闻所未闻。例如,在“积木”原则的指引下,我们可以毫无障碍地说出“如果月球变成立方体的,那我们就可以在立方体的边缘开一个悬崖派对了”。说这种胡话是任何其他地球生物都办不到的,而只有具备这种说胡话的能力,才能为信息共享和社会分工提供几乎空间无限的信息载体。
而一个显而易见的问题就是:人类这种独特的语言交流能力是如何实现的?要知道,我们和近亲黑猩猩的遗传物质差异微乎其微,生理特征甚至相貌的相似度都很高。但是黑猩猩只能通过极其有限的声音和动作来传递信息,相对应地,黑猩猩一般也只会形成 20 多只的小型集团一起生活。那人类语言难道是有一天突然从石头缝里蹦出来的吗?
还别说,上面提到的语言学大师乔姆斯基就一直在鼓吹人类语言是突然出现的偶然现象。更要命的是,因为语言是一种看不见摸不着的东西,很难追溯到远古时期,而大脑本身也很难变成化石,因此人类祖先的化石证据也很难一锤定音地说明人类语言到底是什么时候出现,又是怎样和猩猩们的粗浅交流分道扬镳的。直到今天,人类语言的起源和演化仍然是众说纷纭。
但是从生物学视角,我们倒是可以做一点有趣的探究。
19 世纪下半叶,法国医生皮埃尔 • 保罗 • 布罗卡(Pierre Paul Broca)收治了一位很奇怪的病号。此人智力正常,完全能理解别人说话,自己的发音功能也没问题,但是就是无法把词汇顺畅地组装成句子。我们用中文打个比方,如果要表达“我今天中午想吃面条”,他大概会说成这样:“面条……今天……吃……我……中午。”在这位病人死后,布罗卡医生为他做了尸体解剖,发现他左脑的一个区域(名为额叶,位置大概就在我们额头内)受了严重的内伤。因此布罗卡医生猜测,也许这个大脑区域的作用,就是形成语法,就是语言积木的大框架。无独有偶,稍晚一些,一位德国医生卡尔 • 威尔尼克(Karl Wernicke)也发现如果左脑的颞叶部分——比布罗卡发现的区域稍微靠下一些——出现问题,病人也会失去语言能力。这些病人的表现很不一样,他们可以流利地说话,但是说出来的是毫无意义的组合,比如“面条今天吃我中午”。与此同时,这些患者和布罗卡的病人不同,他们还丧失了理解别人语言的能力。
从那时候开始,人们逐渐开始理解人脑如何理解和产生语言。更多的案例证明,两位医生发现的大脑区域——后来分别被命名为布罗卡区和威尔尼克区(见图 8-11)——分别侧重于语言的表达发声和语言的理解。更重要的是,这两个区域内部以及连接两个区域的神经细胞,在猩猩的大脑中要弱小得多。考虑到人类语言的独特魅力本来就在于语法框架下词汇的自由组合,再考虑到布罗卡区和威尔尼克区对于语法结构的重要性,我们可以猜测,可能正是这些大脑区域的演化给人类带来了独一无二的语言能力。
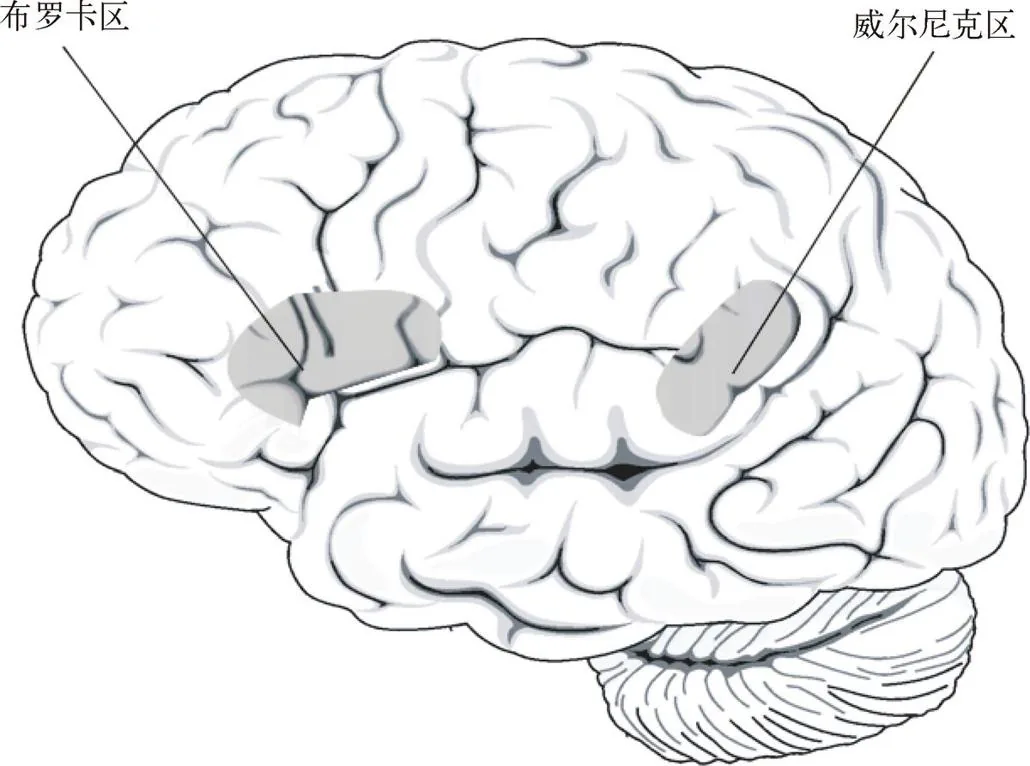
那这些独特的大脑构造又是从何而来的呢?
近年来,有一个名为 FOXP2 的基因引起了不少的关注。如果这个基因出现遗传突变的话,病人的表现和布罗卡区因为疾病或者外伤发生问题的患者很像,说话很慢,咬字不清,而且语法乱七八糟。更有趣的发现是,这个基因在人和黑猩猩之间只有两个氨基酸的微小差别;而这点差别的来源大致可以追溯到 10万~20 万年前,恰好就是我们现代人类(人科人属智人种)诞生的时候。因此,是不是有可能恰恰是 FOXP2 基因的变异让人类和黑猩猩的语言功能天差地别,最终让具备高级语言功能的现代人脱颖而出?如果确实如此的话,那 FOXP2 基因区区两个氨基酸的变化又是如何塑造人类独一无二的大脑,让我们能够听懂别人的语言,并能够讲出流畅的语句的?遗憾地说,我们还不知道。
但是讲到现在,伟大社会的三块奠基石已经呼之欲出了:为了对抗面目千变万化的大自然,生物体放弃了“一个人的战斗”,呼朋引伴地走到了一起;性别的出现催生了生物多样性,为更复杂的社交提供了遗传学的准备,更是让寻找配偶的社交方式五花八门、无所不用其极;最后,语言的出现让更精细的信息分享和分工成为可能。
就这样,我们这种在相貌体能上和猩猩相比并没有什么优势的物种,开始了伟大社会的建造工程,并在二三十万年的时间里,从无到有地建设起了壮丽巍峨的人类文明。