来源页 · 完整讲稿 · 第 24 讲
谁在主宰细胞的命运?
你好,我是王立铭,欢迎来到生命科学50讲。我们继续讲细胞的分工。
上节课,你知道了人身体里面,那么大规模细胞分工的简单过程,知道了细胞命运的三个转折点。
但是你有没有想过,在这个过程中,无数个细胞的命运是怎么变得不一样的?
- 这些细胞都是来自同一个受精卵,为什么后代细胞会变得五花八门?
- 为什么有的细胞会变成胎儿的一部分,有的则会变成胎盘?
- 为什么有的会方方正正的,比如肝脏细胞,有的长得奇形怪状,比如小肠上皮就会长出好多绒毛一样的突起?
- 为什么有的寿命很短,比如红细胞和上皮细胞,一般只有几十天最多几个月的寿命,但是有的神经细胞可以活好几十年?
是什么力量推动他们走向不同的道路呢?
这里,我想用一个物理学常用的概念——对称破缺——来换一种方式解释一下这个问题。
对称破缺的意思简单来说,就是对称被打破了。这就像细胞的分工一样。
打个比方,有一个人类胚胎的细胞,你可以把它看成一个完美对称的球体。但是当它从中间一分为二,变成两个细胞的时候,两个后代细胞的身份就不一样了:一个专门生产神经细胞,一个专门生产皮肤细胞。
这样一来,原本的完美对称就被破坏掉了。那么问题就变成了:在生物体内,对称破缺到底是怎么发生的?
这个问题直到现在都还是生命科学研究的热点问题。因为,想要构成一个生物体,需要的细胞类型实在是太多、太精细了。
换句话说,在生物体内部,对称破缺发生的次数太多、形式太多样了。所以,仍然有非常多的细节问题没有理解清楚。
今天,我想帮助你简单理解一下其中根本性的生物学原理。
一句话概括:细胞的对称破缺,是内因和外因共同作用的结果。
你可能会说,这不是一句正确的废话吗?别急,其实这句话用来解释生物的成长发育过程,是非常准确的。
这一讲,我就具体阐释一下,为什么说细胞的分化、细胞的对称破缺,是内因和外因共同作用的结果,内因和外因又是怎么起作用的。
分工的外因:环境中化学信号的强度
先说外因,也就是环境因素。外因导致对称破缺,在原则上很简单。
我们可以想象一个完美对称的球形细胞,要进行细胞分裂了。与此同时,这个细胞所在的环境里,有一种化学物质分布不均匀:左边高,右边低。这种化学物质可以接近,甚至进入细胞,影响细胞的命运走向。
那接下来发生的事情就很好理解了,完美对称的球形细胞一分为二之后,分出来的两个后代细胞,因为身处在不同的信号环境下,所以出现了不同的命运。
我来用一个真实的例子说明这个过程。
在人体内有一类叫WNT的蛋白质分子,它的个头不大,由三四百个氨基酸组成。
这种蛋白质被生产出来以后,会被分泌到细胞外面,所以对于其它细胞来说,WNT也就成为了它们外部环境的组成部分。
在过去几十年里,生物学家们发现,WNT在身体发育的不同阶段、不同区域、不同细胞类型里,都决定着细胞的命运。
比如,我们提到过,有一种细胞叫红细胞祖细胞。它可以不停地分裂制造红细胞。
当它一分为二,产生两个细胞的时候,这两个细胞有一个会失去继续分裂的能力,变成真正的红细胞;而另一个仍然保留祖细胞的身份,继续分裂制造新的红细胞。
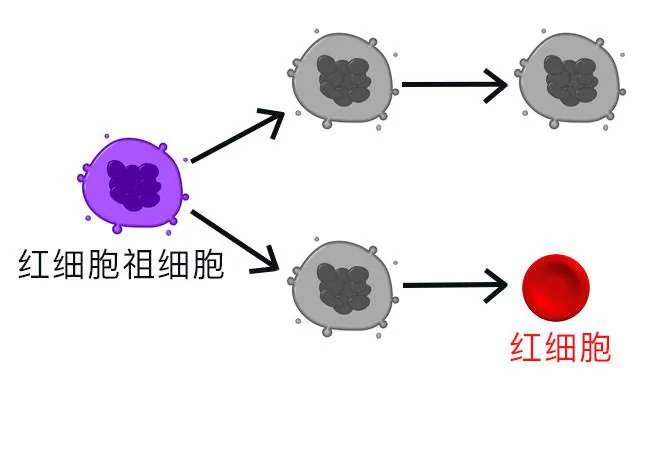
可是到底哪个会变成红细胞,哪个仍然保留为祖细胞呢?这个时候,周围环境的WNT就起作用了。
如果周围的WNT相对少,那么这个后代细胞就会变成红细胞开始干活;而如果周围的WNT相对多,那这个后代细胞还保留祖细胞的身份,可以继续分裂制造红细胞。
所以结果就是,一个红细胞祖细胞不停地分裂,可以在自己身份不变的情况下,不断地产生新的红细胞。
当然了,如果你觉得这一段信息量有点儿大,没关系,WNT这样的专有名词你可以忽略。但是请记住,这个例子说明:外部环境中化学信号的强度,可以作为外因,产生对称破缺,决定细胞命运的走向。
分工的内因:细胞之间的反复博弈
那如果细胞的外部环境差不多,怎么办呢?这时候对称是怎么破缺的呢?下面,我想举另一个例子,说说决定细胞命运的内在因素。
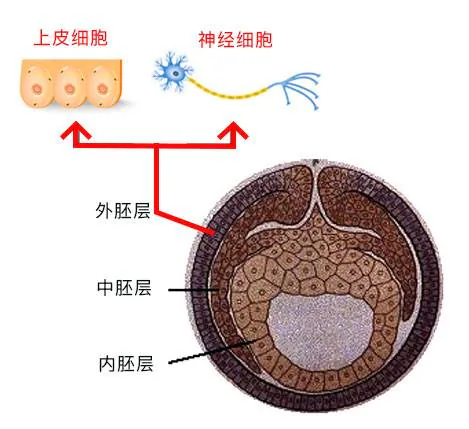
之前我提过,在人体早期发育的时候,人体胚胎里面的外胚层细胞,会继续分化成上皮细胞和神经细胞,走上两条完全不一样的道路。
其实,在一开始的时候,所有的外胚层细胞,你都可以认为是一样的,而且它们身处的环境也差不多。
在这个对称破缺的过程里,细胞的内部条件就起了决定性的作用。很有意思的是,这个对称破缺,是通过几个细胞之间反复多次的博弈之后,共同决定的。
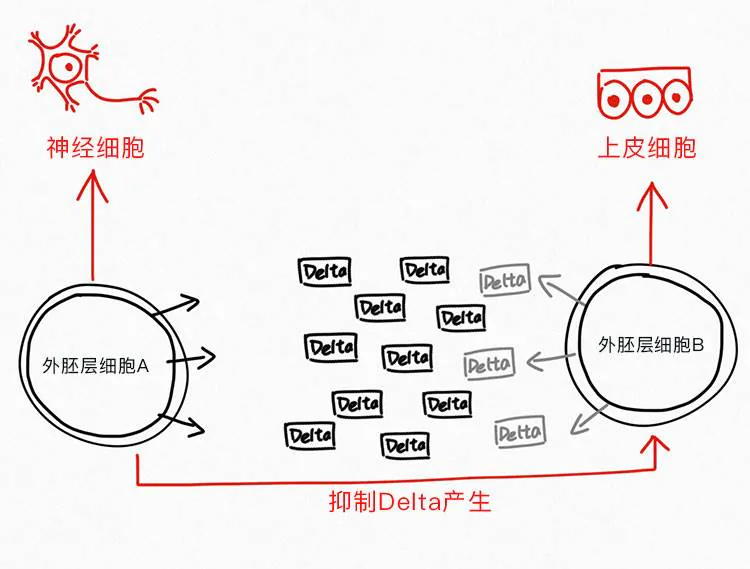
具体来说,这个过程需要一种叫Delta的蛋白质,这种蛋白质是外胚层细胞自己产生的。
现在,我们可以假装你和我,就是这样的两个外胚层细胞,来模拟一下到底发生了什么。
一开始,我们区别不大,自己生产的Delta的数量,周围包围我们的Delta的数量,也是类似的。我们俩之间有一种小心翼翼维持的对称和平衡。
但是,可能就在下一秒钟,我生产的Delta比你多了那么微不足道的一点点。这件事本身不足为奇,生物体内这样的随机波动太多了。但是,因为Delta的两个特性,这微不足道的波动就会引起剧烈变化。
这两个特性是什么呢?
首先,Delta蛋白质有对外的抑制功能。意思就是,一个细胞生产出Delta,能阻止周围别的细胞生产Delta。
其次,Delta能强迫一个细胞变成上皮细胞。如果一个细胞周围的Delta很多,这个被包围的细胞就会变成上皮细胞;反过来,如果它周围的Delta少,它就会变成神经细胞。
好,我们继续回到刚刚的假想,我们还是两个外胚层细胞。
- 当我生产的Delta比你多了微不足道的一点点之后,根据Delta信号的第一个抑制特性,你会因此少生产一点点Delta;
- 而因为你生产的Delta少了一点,对我产生的抑制能力更小了,所以我会生产更多一点点的Delta。
这一直循环下去,原本非常微弱的、甚至是随机导致的差别,就会被放大到非常显著的程度。
你应该已经发现了,这其实是一个正反馈循环。在这样的循环中我生产的Delta会最大化,而你生产的Delta会被彻底抑制住。
然后呢,基于Delta信号的第二个特性,你的周围被大量Delta信号包裹,因此会变成上皮细胞,而我周围什么Delta信号都没有,因此我将会变成神经细胞。
就这样,从一群完全一样的细胞里,在一个没有差别的外部环境里,细胞内部一些非常微弱的随机变化,也能够被持续放大,从而锁定细胞的命运走向。
这一段可能也有点烧脑,我们稍微停顿一下。
抛开具体的生物学机制,这个例子其实说明的是:就算外部环境是一样的,细胞内部非常微弱的信号波动,也可以被反复放大,作为内因决定细胞命运的走向。
所以你看,细胞的对称破缺,还真的是内因和外因共同作用的结果。
当然了,为了便于理解,我只提供了两个具体的例子,WNT和Delta。但是你完全可以把WNT当做是细胞外因的代表,Delta信号当做是细胞内因的代表。
在真实场景里,内因和外因肯定不是非此即彼的,它们之间一定会相互影响,共同决定细胞的命运。
说到这里,我想简单总结一下上一讲和这一讲的核心思想:
在生物体的发育过程中,在一个受精卵变成100万亿个细胞的过程中,细胞命运发生过三次重大转折。
它们出现了精细的分工,形成了成百上千条永不交叉的命运曲线。而主宰它们走上不同命运的,既有外部环境的诱导,也有自身特性的变化。我们身体上每一个器官、每一块组织,都是这么来的。
而这一切发展的巅峰,可能就是我们人类的大脑了。
下一讲,是分工这个元素的最后一讲,我会带你看看,我们的大脑到底是如何发育而来的,其中有没有什么独特的原理。
我们下一讲见。