来源页 · 完整讲稿 · 第6讲
可遗传的变异(下):进化的物质基础是什么?
上一讲,我们讨论了可遗传的变异。达尔文在《物种起源》一书中,已经对这种现象做过非常精彩的论述。
但是你可能想不到,至少在达尔文的时代,他关于可遗传的变异的这套解释,其实并没有实验证据支持,而仅仅是一套非常优美简洁的理论而已。优美简洁,自然能说服大量的科学家追随这个学说,但还不足以把它变成一个实实在在的科学理论。
为何达尔文的观点在当时还不是科学?
请注意,达尔文的论证不自觉的运用了“奥卡姆剃刀”的思想工具:当好几个理论都能解释一个现象时,应该选择需要假设最少的那个。
比如,达尔文认为,所有的家养鸽子都来自一个共同祖先。其实并没有严格的证据支持,但却是需要假设最少的。
你看,如果这些鸽子确实是不同的物种,那我们就得假设它们都有各自野生的祖先,但这些祖先恰好都灭绝了;还得假设这些物种因为不明的原因,出现了某些共同的特征,比如青色的羽毛;还得假设它们碰巧能彼此交配繁殖,而不像其他物种一样彼此无法产生后代……
相比之下,达尔文提出的“同一祖先+可遗传的变异+定向培育”的理论,只需要一个假设,也就是“这些鸽子都是原鸽的后代”就足够了。
同样的,“可遗传的变异只能产生于生殖细胞内部,而不能来自父母的生活经验”这一点,其实当时也没有什么严格的证据支持。
达尔文确实做过一番推测,他认为,生物的生殖系统是最容易受到环境影响的。被人工饲养的生物可以活得还不错,但繁殖后代时往往有难度。这一点,在今天的动物园里也体现得特别明显,以至于很多时候,动物园的动物生育后代还能上新闻。根据这些观察,达尔文就推测说,如果生物真的出现什么变异的话,应该最容易出现在最容易受影响的生殖系统里。
你看,这个猜测其实不怎么严密,但比拉马克的解释简单多了。因为如果拉马克是对的,我们就得假设生物所有器官的使用状态都通过某种神秘机制实时汇总到了生殖细胞里,被忠实的记录下来,然后再传给下一代。这个过程未免也太复杂了。
证明可遗传的变异的两个关键实验
但是话说回来,一个理论优美简洁,不代表它就一定是对的。科学史上这样的案例多了。托勒密的地心说、亚里士多德的五种元素、牛顿的绝对时空观、爱因斯坦的“上帝不掷骰子”,都优美简洁,但都是错的。既然进化论是个科学理论,最终还是得靠证据说话。
从科学意义上说,要等到 20 世纪的中期,“可遗传的变异”才得到最终的证明。这里,我们讨论两个特别重要的实验证据——第一项研究来自美国科学家赫尔曼·穆勒。
1926-1927 年间,穆勒发现,如果用一定剂量的 X 射线照射果蝇,虽然这些果蝇自己看起来一切正常,但它们的后代会有很大比例出现各种各样的变异,有些干脆是致死的,也有些虽然不致死,但会让果蝇的后代变得非常怪异,比如眼睛的颜色、翅膀的大小,会变得很不一样。而且他也证明了,X 射线照父母中的哪一方,哪一方的性状在后代里就更容易变异。
这个发现用一种暴力的方式证明了达尔文的推测。你看,在特定的刺激下,生物果然会生育出大量存在变异的后代,而且这些变异还能遗传下去。请注意,既然被 X 射线照过的果蝇祖宗没有什么异常,这些变异只出现在它们的后代中,那就说明可遗传的变异确实发生在生殖细胞,而不是拉马克说的全身。
顺便说一句,穆勒的研究之后,人们才意识到,X 射线可能会对人体,特别是对后代,产生潜在的威胁。我们现在去医院做 X 射线检查,医生一般都会问你最近有没有生孩子的打算,或者给你穿上能阻挡 X 射线的铅衣,根源就在穆勒这里。
另一项研究完成于 1943 年,是生物学家路利亚和德尔布鲁克合作完成的。
他们先培养一管大肠杆菌,然后把这些大肠杆菌平均分到好多个新试管里,再在试管里加入更多的培养液,让大肠杆菌分裂繁殖一段时间。由于最初是平均分配的,所以理论上每个试管里大肠杆菌的数量应该大致相当。
接着,他们把每一管大肠杆菌分别倒进一个培养皿里。这时候,真正的挑战来了,因为每个培养皿里都事先准备了一种能够入侵和杀死大肠杆菌的病毒——T1 噬菌体。
这个实验非常简单,但根据达尔文和拉马克的理论,会得出完全不同的预测——拉马克认为,生物的特性是用进废退的结果,是生活环境逼出来的。既然如此,面对噬菌体的巨大威胁,也许有个别细菌战士能够发展出抵抗能力,血战到底,免于一死。既然每一个培养皿里的细菌数量都差不多,那能够发展出来的能抵抗噬菌体的细菌数量也应该是类似的。
相反,如果达尔文是对的,可遗传的变异是自发形成的,和生活经历无关,那我们就不能指望噬菌体能从无到有的诱导出细菌的抵抗力了。就算有些细菌有了抵抗力,那也不是噬菌体诱导出来的,而是在繁殖过程中偶然通过基因变异获得的。
既然基因变异是随机的、偶然的,那不同培养皿里剩余细菌的数量就应该不一样——可能有的培养皿里有一两个,有的特别多,而有的可能一个也没有。
结果,实验又一次证明了达尔文的猜测:不同培养皿里剩下的细菌战士的数量,真的差别很大。
到这个时候,“可遗传的变异”才算是被比较严格的证明了。
定位可遗传的变异的三个关键实验
接下来,一个重要的问题是,这种“可遗传的变异”的物质基础是什么?是如何产生和被稳定继承的?
受时代所限,达尔文只能把范围限定到生殖细胞,再深就走不下去了。而我们今天知道,可遗传的变异存在于生物的基因组 DNA 上。科学史上,三个重要的研究接力完成了这次认识的飞跃。
第一个研究出现在 1910 年代。穆勒的博士生导师、美国科学家托马斯·摩尔根,首先把变异定位在了细胞内部的染色体上。
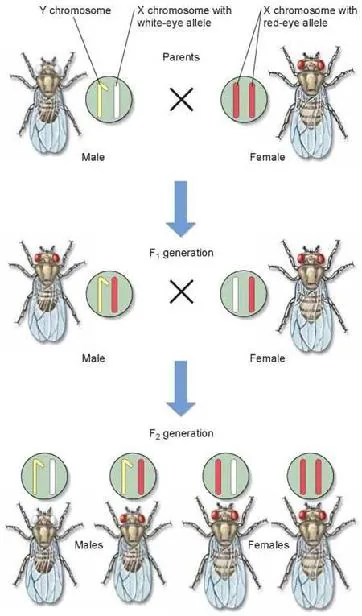
摩尔根同样使用果蝇为研究对象。1910 年的某一天,他偶然发现了一只白色眼睛的雄性果蝇,而正常果蝇眼睛的颜色是鲜红色的。摩尔根把这只得来不易的变异果蝇和正常的雌性果蝇杂交,发现第一代后代几乎全部都是红色眼睛,白色眼睛的变异消失了。
但这些后代再次杂交之后,情况又不一样了——雌性后代仍然都是红色眼睛的,很正常,但雄性当中红眼、白眼差不多一半一半。
这个现象该怎么解释呢?
你看,如果把代表白色眼睛的变异想象成一种自由扩散的颗粒,能够随着生殖细胞代代相传,那就无法解释为什么第一代后代没有白眼,也无法解释为什么白眼到第二代只出现在雄性身上。
于是,这个现象最简单的解释就是——决定白色眼睛的变异,就定位在第一只白眼果蝇精子的 X 染色体上。这里稍微有点儿不太好理解,你可以结合下面这张图片理解——
第二个研究出现在 1940 年代。那时候,人们已经确定了可遗传的变异就定位在染色体上,而染色体主要的成分就是蛋白质和 DNA。可到底是在蛋白质上还是 DNA 上呢?
美国科学家奥斯瓦尔德·艾弗里在研究肺炎链球菌时发现,遗传信息的载体只能是 DNA 分子。
肺炎链球菌有两种,表面光滑的危害大,能感染杀死老鼠;表面粗糙的危害小。艾弗里发现,如果把光滑细菌杀死之后,和粗糙细菌混合,就能把粗糙细菌“转化”成光滑的致病菌。
他进一步发现,其实只要把光滑细菌的 DNA 分子提取出来,和粗糙细菌混合,同样能起到“转化”的效果。换句话说,代表外表光滑、能够致病这个特性的生物学信息,记载在肺炎链球菌的 DNA 分子上。这就进一步把可遗传的变异定位在了 DNA 上。
顺便插一句话,在艾弗里之前,人们普遍不太相信化学结构简单的 DNA 是遗传信息的载体,更多人觉得蛋白质是更可能的候选。艾弗里的研究把科学家的注意力重新拉回到了正确的轨道上。
第三个研究则是我们非常熟悉的 DNA 双螺旋。
1953 年,两位年轻科学家弗朗西斯·克里克和詹姆斯·沃森,共同提出了 DNA 分子的结构模型。他们认为,DNA 分子是由两条 DNA 长链首尾相对拧成的一根螺旋,每根长链都是由 A/T/C/G 四种碱基按照特定的顺序排列组合而成的。生物体的遗传信息就记录在这四种碱基的排列顺序之中。
最值得我们注意的是,两根 DNA 链条上的碱基有着非常专一的配对关系,A 只能对应 T,C 只能对应 G。这意味着,两根 DNA 链条虽然化学组成完全不同,但携带的信息却是等价的。生物繁殖后代的时候,就把 DNA 双螺旋一拆为二,两条单链分别再组装一条碱基分子恰好和自己完美对应的链条,就重新拧成了两个独立的双螺旋。这就保证了遗传信息被忠实的传递到后代当中。
不管是白眼的果蝇还是尾巴更大的鸽子,这些变异对应的就是 DNA 分子上碱基的排列顺序出现了错误。这种错误可能很微小,比如某一个碱基从 A 变成了 C,也可能非常剧烈,比如一长串碱基整个消失或者插入。而变异一旦出现,就有可能伴随着 DNA 的复制,被一代代忠实的传递。
直到这个时候,达尔文提出的“可遗传的变异”才真正找到了坚实的物质基础。
下节预告
但是,在达尔文大获全胜之后,拉马克的主张竟然还有一次历史性的复兴,让我们对可遗传的变异有了更全面的理解。这一点,我们下一讲细说。
我是王立铭,我们下一讲再见。
划重点
- 达尔文在论证“可遗传的变异”的时候,不自觉的运用了“奥卡姆剃刀”的思想工具。
- 虽然可遗传的变异的解释优美简洁,但在当时并没有实验证据。这些证据都是后来补上的。
- 从生殖细胞到染色体,到 DNA 分子,再到 DNA 碱基序列,经过一代代科学家的努力,“可遗传的变异”才真正找到了物质基础。