来源页 · 完整讲稿 · 第37讲
分工与协作:怎样实现个体能力的有效叠加?
读者,你好。欢迎来到《进化论 50 讲》,我是王立铭。
接下来两讲,我们继续生物世界的复杂性问题,集中讨论一下在复杂生物组织内部会产生什么新的规律。
具体来看,在复杂组织内部,分工合作、对抗博弈同时都存在,并且一同维持着组织的秩序。这一讲,我们先说分工和合作;下一讲,再说对抗和博弈。
细胞分工为何重要?
首先,我们可以对比多细胞生物和单细胞生物,看一下细胞的分工有什么重要价值。
这里要说明的是,从单细胞生物到多细胞生物的跨越,在进化上意义重大,但技术难度似乎并不特别大。
这一点从逻辑上并不难想象。我们知道,单细胞生物的繁殖方式是细胞分裂。一个细胞从中断裂,制造出两个独立细胞,两者分离开来、各自求生。在细胞分裂的最后一步,只要出现一些特殊的基因变异,导致两个后代细胞无法彻底分离,继续黏连在一起,一个简单的多细胞生物就能诞生了。
最原始的多细胞生物应该仅仅只是堆积了更多的细胞数量,细胞之间还没有出现功能分工,每个细胞的功能完全一致。但即便如此,这种生物也具有特殊的生存优势——个头变大,让自己更不容易被捕食。
比如,有一种很常见的单细胞生物叫“小球藻”。研究发现,如果在水中加入一种体型稍大、专门以吃小球藻为食的鞭毛虫,只需要短短一个月,小球藻就能迅速进化出一种多细胞形态。八个小球藻紧紧靠在一起,外面还包裹上一层厚厚的细胞壁。这样一来,它的尺寸就大大超过了它的天敌,从而就逃脱了被吃的命运。类似的我们也可以想象,体型变大以后,它对环境波动的抵抗力也会增强。
更重要的是,多细胞生物出现以后,细胞之间就有了出现分工的机会。
单细胞生物只有一个细胞,所以这个细胞需要完成生命从生到死的所有活动,比如获取能量、防御危险、繁殖后代等等。但这些活动很多时候无法同时完成,甚至是相互冲突的。
举个例子:
在酵母细胞繁殖后代的过程中,有一种叫作“微管”的蛋白质起到了关键作用。它能够形成长长的细丝,像绳子一样牵扯着 DNA 移动,把DNA 平均分配到两个后代细胞里。但是请注意,微管蛋白质除了参与细胞繁殖,也参与细胞的运动。酵母细胞表面那些能够拨动水流的鞭毛和纤毛,同样是微管分子组成的细丝。
这样一来,就产生了生殖和运动之间的矛盾。生命在生殖的时候就没办法运动,运动的时候就不能分裂繁殖。这带来的问题是显而易见的。比如,如果正好在繁殖的时候,天敌来了,怎么逃命?如果在恶劣的环境下,必须不停运动逃生,怎么安静下来繁殖后代?
而多细胞生物就能很容易的化解这个矛盾。如果一个生命由两个粘在一起的细胞组成,那就可以做一次非常简单的分工。一个细胞专门负责生殖、不负责运动,而另一个细胞专门负责运动、不管生殖的事。这样一来,生殖和运动这两个机能就不再需要不断的暂停和切换了,而是可以持续不断地同时进行。
自然界有一种叫作“团藻”的多细胞生物就是这样的。它就只有两种不同的细胞,一种是体型较小、长着鞭毛的体细胞,专门负责运动;另一种是个头很大、没有鞭毛、专门负责复制和分裂的生殖细胞。
细胞分工和对称破缺
细胞分工的生物学价值很大,那么细胞分工又是如何出现的呢?
基本原则其实还是我们讨论过的对称破缺。单细胞生物的细胞分裂是对称的,产生的两个后代完全一样。但对多细胞生物来说,只要在细胞分裂中动些手脚,让两个后代细胞不完全相同、出现差异,细胞分工就能出现了。具体来说,对称破缺的实现有两个路径——外因和内因。
首先看外因。我们用人体小肠上皮细胞的繁殖来讨论一下外因的作用。
小肠是人体吸收营养的主要器官。为了最大化和食物的接触面积,提高吸收效率,小肠上出现了密密麻麻的褶皱。褶皱的凸起处被称为“小肠绒毛”,是营养吸收的主要部位。小肠绒毛表面的上皮细胞直接和食物接触,生存环境恶劣,工作强度也大,所以平均寿命很短,只有大约一周左右。
而褶皱的凹陷部位,则藏着一部分小肠干细胞,用来持续分裂和补充新的小肠上皮细胞。
这些干细胞的分裂过程就是典型的对称破缺现象。在每一次分裂中,小肠干细胞产生的两个后代细胞会有一个仍然处在凹陷内部。在凹陷内部的特殊化学环境的保护下,它能够保留分裂能力,继续扮演干细胞的角色;
而另一个新生的后代细胞则会被“挤出”凹陷,离开了这个微环境,它就会变成一枚有营养吸收功能但不再有分裂能力的小肠上皮细胞,开始自己时长一周的生命周期。
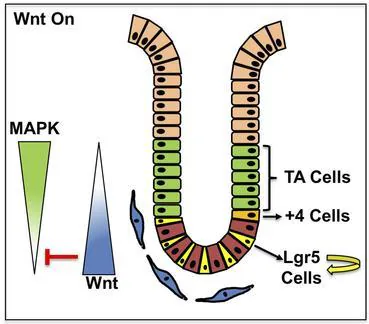
在这个案例里,小肠褶皱凹陷处特殊的化学环境打破了细胞分裂的对称性,让分裂后的两个细胞走向了不同的命运。
接下来我们看内因。内因决定分工的逻辑有些烧脑,我们用上皮细胞和神经细胞之间的分工来论证一下。
这两类细胞原本有共同的来源。但在细胞分裂的过程中,它们之所以能自发的实现对称破缺,形成不同的功能,核心原因就是一对名叫Notch 和 Delta 的蛋白质。
原本相邻的两个细胞,在分裂刚完成时几乎没有区别,都生产同样数量的 Notch 和 Delta。但就像我们讲过的圆锥体和玻璃球的例子一样,这种平衡是精妙而脆弱的。在某个瞬间,可能细胞 A 生产的 Delta 比细胞 B 多了微不足道的一点点,这种波动在生物体内部是经常出现的,但这个微小的波动随即就会被一个正反馈剧烈的放大,让细胞 A、B从此走上不同的命运。
具体看的话,两个蛋白质都位于细胞表面。细胞 A 表面的 Delta 蛋白质多了一点点,那接触细胞 B 表面的 Notch 蛋白就能抑制细胞 B 生产Delta。而细胞 B 生产的 Delta 少了一点点,它对细胞 A 表面 Notch 的抑制就被解除了一点点,于是会让细胞 A 再多制造一点 Delta。
这样反复进行之后,最初那一点点 Delta 蛋白的微小差异,被迅速放大和固定下来,产生了两个截然不同的细胞——一个拥有大量 Delta,另一个几乎没有。这种差异足以让两枚细胞分别走上上皮细胞和神经细胞的分工之路。
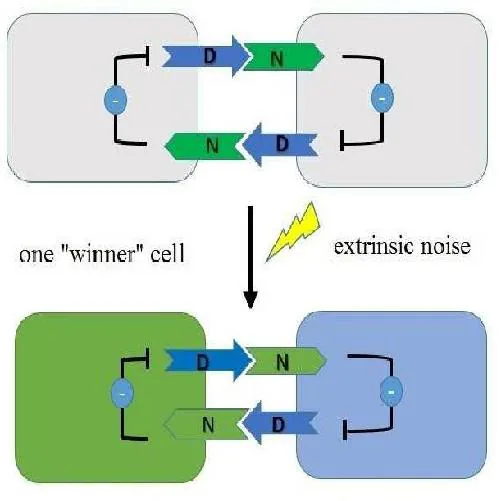
归根结底,不管是外部化学环境,还是内部的正反馈,都可以打破细胞分裂过程中的对称性,制造出两个存在差异的后代细胞,实现不同的生物学功能。类似的事件在多细胞生物生长发育的整个过程中都在反复发生。
在这个过程里,每一个细胞的命运都会发生持续的转折,我把这个过程叫作“潜能换功能”。最开始的时候,受精卵具备无限的分工潜能,因为未来生物体的所有功能都隐藏在这颗受精卵之中,它具备繁殖出任何特定细胞的能力。
但到了生物发育的末端,绝大多数身体细胞在具有了某种具体的生物学功能之后,就永久性的失去了繁殖的能力。
细胞间的合作
讨论完了细胞间的分工,我们再看看它们之间如何合作。
细胞之所以需要合作,一个最简单的解释就是,只有这样才能实现单个细胞无法实现或者实现起来效率不高的功能。
还是回到小肠上皮细胞的例子。在这个例子里,单个上皮细胞其实就能具备工作能力,有一部分表面朝向小肠内部,可以直接吸收小肠内的营养物质。但是,单个细胞的吸收效率显然是不高的。
而在人体中,无数个小肠绒毛细胞彼此用细胞侧面紧密连接在一起,把正面朝向小肠内部,形成了一段长达 4-6 米、表面积高达 200 平方米的小肠,就像用一块块砖严丝合缝的砌起了一道墙一样。相比单个细胞,这些细胞合作形成的小肠器官在吸收营养方面显然有更好的表现。
它形成了一个严密的物理屏障,让食物残渣缓慢的流过小肠表面,保证营养物质有充分的时间和机会被吸收。
这说的是合作提高效率。更进一步的,细胞之间的合作,也能实现单个细胞根本无法实现的功能。
神经系统就是一个特别好的例子。
神经细胞的经典形态是这样的:细胞的一端长着一丛树杈状的突起,另一端长着孤零零一根细长的突起。前者被称为“树突”,用来接收来自其他神经细胞的信号;后者被称为“轴突”,用来向其他神经细胞输出信号。在神经细胞内部,信号在树突和轴突之间单向传输。这就构成了一个简单的信号采集和输出系统。
就像我们无法想象细胞由单个蛋白质构成,或者电路由单个三极管构成那样,神经系统的工作也无法由单个细胞完成,而是需要多个神经细胞的配合。
有些时候,神经细胞之间形成纵向的连接,一枚细胞用树突接收到信号、把它传向轴突,再接力给下一枚神经细胞的树突并继续向下传递,用这种方式实现信号的长距离输送。而在另外一些时候,神经细胞之间还能形成负反馈、正反馈、前馈等信号网络,实现信号的处理。
信号的长距离传输也好,信号的精细处理也好,都需要彼此形成连接,彼此发送和接收信息。这些都离不开神经细胞之间的合作。单个细胞是无法实现这些功能的。地球上最简单的神经系统也至少需要几百到几千个神经细胞。
下节预告
说完了分工与合作,下一讲,我们再看看复杂生物体内的博弈与对抗。
我是王立铭,我们下一讲再见。
划重点
- 多细胞生物的出现,除了增加了生物体的体积,堆积了更多的细胞数量,更重要的是为细胞之间的分工提供了平台。
- 细胞的分工是通过对称破缺实现的。外部环境的差异、内部状态的影响,都能打破细胞分裂的对称性,制造差异化的后代细胞。
- 细胞之间发展出的各种合作形式,能帮助它们实现单个细胞难以实现或实现起来效率不高的功能。