来源页 · 完整讲稿 · 第12讲
生命之树:生物进化历程的全貌是怎样的?
在上一模块,我们花8 讲时间梳理了进化论的公理体系。从这一讲开始,我们进入课程的新模块,用9 讲内容一起看看在这套公理体系的支撑下,生物的进化会呈现出哪些基本的特征。
当然,作为一门“放羊型”科学,进化论没有能力也并不指望能从几条简单的公理出发,推演出生命现象的各种细节。但是,一些基本的特征和规律还是可以预测和讨论的。所以我们试图回答的是,哪怕生命出现在一个完全不同的时间、地点,甚至是遥远的外星球,在等待足够长的时间之后,进化的过程会呈现出什么普遍性的面貌呢?
这个问题,其实达尔文自己就给出了一个精彩的回答——生命之树。
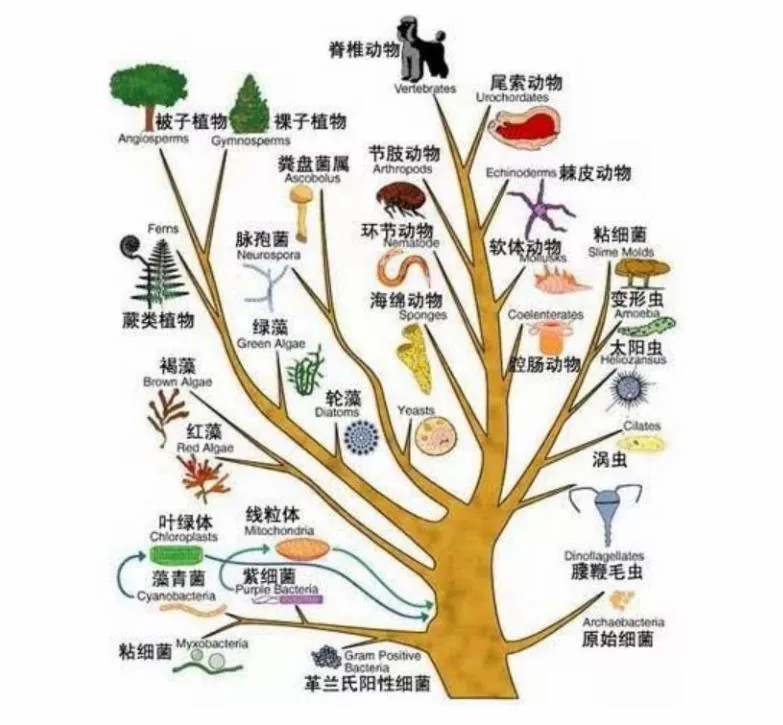
我猜,你在中学课本、博物馆、科学新闻里应该看到过进化树。大致的画法就是一棵枝繁叶茂的大树,大树的树根处画着细菌这样的单细胞生物。随着树干的生长,逐渐出现分叉,几个巨大的分叉可能是植物、动物、真菌。
每一个巨大的分叉上,还有无数细小的分叉。比如,动物的大分叉上有脊椎动物的分叉,脊椎动物的分叉上还会有哺乳类的小分叉,哺乳类的小分叉上还会有灵长类的微小分叉……靠近顶端的,往往是人们认为最复杂、最高等的生物。
但我得首先强调一句,这种进化树的画法是极端错误的。原因我一会儿会说到,这里咱们先来看看正确的思路是什么。
从静态的分类到动态的进化树
其实,达尔文在《物种起源》里亲手绘制了一张假想中的进化树,也是这本书唯一的一张插图。对于喜欢追究细节的达尔文来说,在自己最重要的作品里做了一次伽利略和牛顿式的思想实验,这件事本身就足够不同寻常了。
不过这其实也说明,进化树的基本面貌完全可以根据进化论的几个重要公理直接推演出来,不需要实验证据的支持。
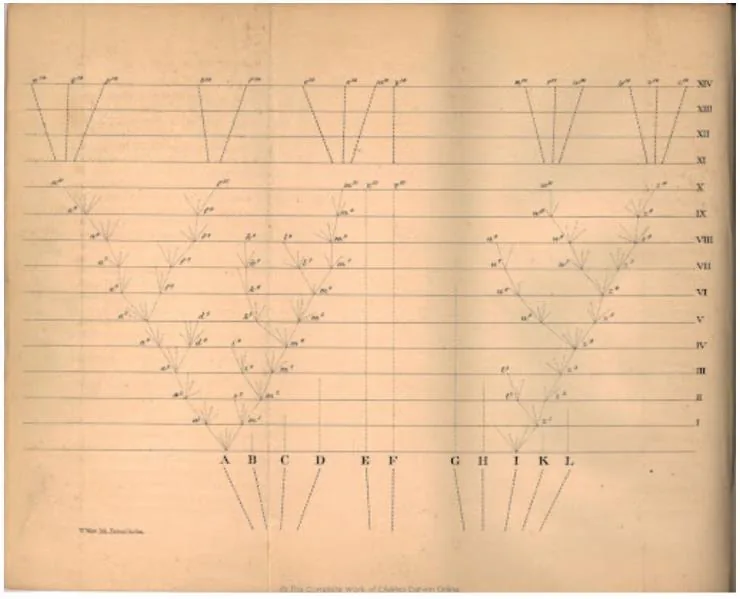
我们可以还原一下达尔文的推导过程:
首先,在达尔文之前人们就已经意识到,地球生物固然各个不同,但彼此间也不是杂乱无章的,而是可以按照一定的规则进行整理和分类。
18 世纪,瑞典植物学家卡尔·林奈就创造了一套分类方法,把当时他所知道的10000 多种植物按照纲-目-属-种的方式分门别类的整理了出来。这套方法在后世被发展成了界-门-纲-目-科-属-种七级分类系统。
这套分类系统的逻辑是金字塔式的。特别相近的几个物种被分在同一个属,比较相似的属归入同一个科,以此类推。反过来说,根据生物的分类地位,我们就可以大致判断它们的相似程度。比如,不同科的生物,差别应该就比同科不同属的生物大。
但是在林奈的时代,人们还没有生物进化的知识,“上帝创造万物,物种亘古不变”是主流思想。在这种思想背景下,生物的分类系统其实只是把上帝的制造物按照某种规律编个码、排个号,方便人们观察学习而已。
就像图书管理员给书籍分类。我们这门课程如果出书的话,大概率会被分到“科学技术-自然科学-生物学-进化生物学”的门类下面,而《红楼梦》大概会被分到“文学-古典文学-中国古典文学-中国古典小说”的分类下面。这种分类主要是方便管理员和读者检索,没有特殊含义,也不能反映我和曹雪芹之间有什么关系。
但是到了达尔文这里,在进化之光的照耀下,原本静态的、代表现状的分类系统突然活了过来,能告诉我们很多历史上曾经发生过的事情了。
你看,我们知道,生物是在持续变化的,并且会在可遗传的变异-生存竞争-自然选择-生殖隔离这四个环节的驱动下,出现新特征,乃至新物种。既然如此,两种在分类系统里非常靠近的生物,除了特征相似之外,是不是在进化历史上的关系也很接近呢?说得直白一点,是不是因为它们在不久之前还是同一种生物,所以大部分特征才很相似呢?
按照这个逻辑继续推演,这两个物种肯定会伴随着可遗传的变异-生存竞争-自然选择-生殖隔离的驱动,继续分叉,变成更多的物种。这些新物种有的会在进化中被淘汰,有的可能会保持不变,有的则会继续变化、分叉下去。
那么可想而知,如果给定足够长的时间,同一种生物产生的分叉会越来越多,距离也越来越远。这是不是就是不同属、不同科、不同目、不同纲、不同门、不同界的生物的来源呢?
我们先暂停,总结一下刚刚的推演:
生物身处持续的进化和分叉当中,时间越长,分叉越多,彼此的距离越远。所以,今天生物分类表里越相近的生物,可能分开的时间越短,在不久前还拥有一个共同的祖先。反过来,分类关系越远的生物,可能分开的时间就越长。
既然如此,如果回溯过去,我们会率先遇到相近生物——比如同一个属——的共同祖先,再遇到同一科、同一目的共同祖先。那么,是不是只要回溯的时间足够长,我们就会找到现存所有生物的共同祖先?
就这样,达尔文完成了一次伟大的思想实验。他不依靠任何试验证据,就从自己的进化论的理论体系中,推演出了生命进化的整体面貌。
生命的起点是共同祖先,共同祖先在漫长的历史上不断出现变异,有些变异在反复的竞争-选择-隔离的循环中被固定下来,分化出了万千物种。先分道扬镳的,成为进化树上粗大的分叉,比如细菌、动物、植物、真菌;后招手道别的,成了进化树上较小的分叉,比如爬行类和哺乳类。
人和黑猩猩、大猩猩这些最近几百万年才分手的物种,从进化尺度上看,都是真正的血亲关系。
生命之树:进化的时间记录
用生命之树的方式,而不是图书馆目录的方式,理解地球上千万形态各异的物种,确实是一个非常简洁和优美的思想。特别是它把静态存在的万千物种,放到了生物进化的漫长时间里去观察。
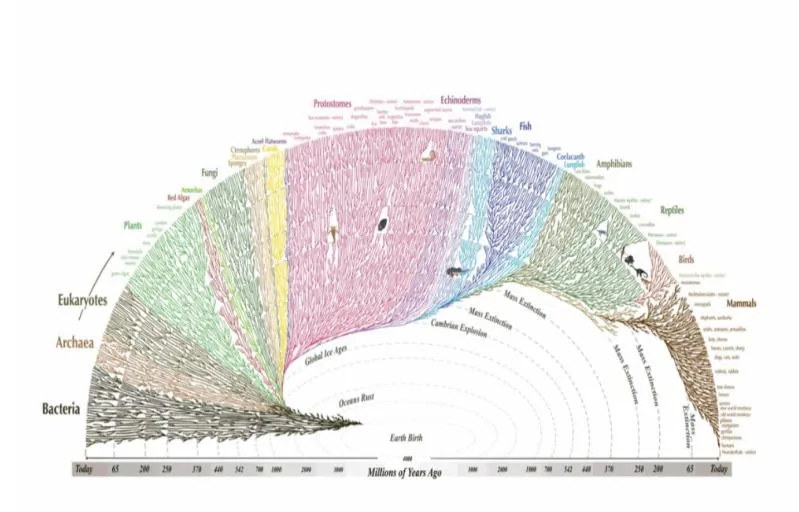
我们可以想象一下这棵生命之树:
它的高度代表了生物进化的全部时间,靠近树根的时间更古老,靠近枝头的时间更近,此时此刻,就是这棵树的最顶端。如果你想要了解某个时间,比如1 亿3000 万年前地球生物的面貌,就把自己想象成园丁,找准高度,拿把大剪刀,咔嚓一刀剪下去,你看到的枝杈就是。
这么一说,我想你就理解为什么我说,很多进化树的画法是错误的了——
因为现存的地球生物,不管是单细胞的细菌、真菌,还是复杂的小麦、水稻,不管是亿万年前已经出现的活化石物种,比如腔棘鱼、银杏和中华鲟,还是出现时间很短的新物种,比如只有20-30 万年历史的现代人类,只要在今天这个时间断面上还在生存和繁殖,它们的位置就都在进化树的顶端,不分高下。
只有那些曾经出现但是已经灭绝的生物,比如恐龙,它们的位置才会出现在进化树靠下的位置,必须靠人们的发掘,拨开进化树顶端的枝丫才能重见天日。
说到这里,你应该理解常见的进化树示意图到底什么地方错了。在那些图里,最早出现但现在依然存在的生物,往往被画到了树根附近。
如何把生物准确地分类?
这么说的话,一个新问题就出现了:
如果现存物种都位于进化树的顶端,那我们怎么还原出进化树的全貌,怎么知道生命之树上哪些枝条更靠近?怎么知道这些现存物种要回溯到哪个分叉点才会连接在一起呢?
我们当然可以笼统的说,特征差别越大的生物,在进化树上的位置就越远,植物和动物的距离显然就比两种动物远。但是,这个粗糙的标准对于比较接近的物种就不好用了。
举个例子:生物分类学的开山鼻祖林奈在给哺乳类动物分类的时候,曾经把蝙蝠也放到了灵长目,和人类、猿猴在一起。他的理由是,这些动物上下颚都各有四颗门牙、两颗虎牙;都有双手双脚;手脚上都有椭圆形的指甲;而且都以水果为食。
我们现在可能觉得林奈的标准有点儿匪夷所思,但问题就在于,生物之间可能存在大量的特征差别,用哪些作为分类标准,本身就成了一个很主观的选择,出现错误、争论是难以避免的。
除了根据现存生物的外在特征进行分类之外,还有一个办法,就是在化石证据中寻找共同祖先,也就是生命之树上那些恰好位于分叉位置的物种。
但这个思路的麻烦在于,并不是所有节点性的物种都留下了化石证据,它没有办法定位所有的枝丫,只能在极少数场合用来做验证。
当然,在遗传物质DNA 被发现之后,这个问题有了更系统的研究方法。人们可以通过DNA 测序,获得现存生物的基因组序列信息,然后比较不同物种的基因序列的差异,推测它们之间的距离。
这种分类思路的好处是显而易见的。理论上说,地球上每一种现存生物的基因组序列信息都可以被精确测定,其中大量的序列片段都可以用于物种分类和生命之树的绘制。
从某种意义上说,相比根据具体的生物学特征或者化石证据为生物分类、绘制生命之树,用基因组序列分类才是真正的大数据方法,可以无差别也没有预设立场的把生物大量乃至全部的遗传信息用于分类。
总结
人们很早就知道,地球上生活着千千万万形态、结构、生活方式千差万别的物种,也早就开始用图书管理员给书籍编号分类的思路整理这些物种的信息。
但只有进化论诞生之后,人们才开始带着动态、历史的眼光理解生物分类。人们这时候才意识到,现存地球生物彼此关系的远近,代表着它们共同渊源的长短,反映了它们在生命之树上位于什么分支、哪片树叶。
下节预告
既然生物进化历史的全貌是这么一棵大树,那我们对于进化规律的探究,其实都可以从这棵树的特征上寻找。
这棵树的根在哪里?它如何确定和改变生长方向?每根枝条生长的速度有多快?接下来几讲,我们就沿着这些问题,一起看看生物进化在整体上呈现出了什么规律性的特征。
我是王立铭,我们下一讲再见。
划重点
- 生命的起点是共同祖先,共同祖先在漫长的历史上不断出现变异,分化出了万千物种。先分道扬镳的,成为进化树上粗大的分叉;后招手道别的,成了进化树上较小的分叉。
- 只要是现存的地球生物,它们就都在进化树的顶端,不分高下。只有那些曾经出现但是已经灭绝的生物,才会出现在进化树靠下的位置。
- 虽然人们很早就开始给生物分类,但只有进化论诞生之后,人们才开始带着动态、历史的眼光理解生物分类。